۳.۵ ریتمهای مغزی و نقش آنها در محاسبات
مسئله آغازین: فرض کنید در یک جلسه استراتژیک سازمانی نشستهاید. مدیرعامل در حال صحبت کردن است، اما در همان لحظه، مدیر مالی در حال ورق زدن گزارشهاست، مدیر بازاریابی به تلفن همراهش نگاه میکند، و مدیر فناوری در حال تایپ کردن روی لپتاپش است. آیا این جلسه، به تصمیمگیری مؤثر منجر میشود؟ احتمالاً نه. زیرا هماهنگی وجود ندارد: هر بخش از سازمان، در زمان متفاوتی و با ریتم متفاوتی کار میکند. اما حالا تصور کنید همین جلسه، با یک هماهنگی دقیق برگزار شود: همه در یک لحظه به یک موضوع گوش میدهند، سپس هر کس در زمان مشخص نظر خود را ارائه میدهد، و در نهایت، تصمیم هماهنگ گرفته میشود. این جلسه، بسیار مؤثرتر خواهد بود.
مغز، دقیقاً با همین چالش هماهنگی مواجه است. میلیاردها نورون، در نواحی مختلف مغز، در حال پردازش اطلاعات هستند. اگر این نورونها هماهنگ نباشند، اطلاعات پراکنده میمانند و درک منسجم غیرممکن میشود. مغز، برای حل این مشکل، از ریتمهای عصبی استفاده میکند — نوسانات هماهنگ در فعالیت گروههای نورونی که پنجرههای زمانی برای ارتباط مؤثر ایجاد میکنند. در این بخش، به بررسی این ریتمها و نقش آنها در محاسبات عصبی میپردازیم — و خواهیم دید که چگونه این ریتمها، معادل عصبی جلسات هماهنگ سازمانی هستند.
۳.۵.۱ مقدمه: نوسانات بهعنوان مکانیزم هماهنگی زمانی
ریتمهای مغزی (Brain Rhythms) یا نوسانات عصبی (Neural Oscillations)، الگوهای هماهنگ فعالیت الکتریکی در گروههای نورونی هستند. این نوسانات، نه یک نویز تصادفی، بلکه مکانیزمی بنیادین برای هماهنگی زمانی و ارتباط بینناحیهای در مغز محسوب میشوند. برای درک این مفهوم، ابتدا باید بفهمیم که چرا مغز به هماهنگی زمانی نیاز دارد.
مشکل اتصال (Binding Problem)
یکی از مشکلات بنیادین در علوم اعصاب، مشکل اتصال (Binding Problem) است. فرض کنید به یک سیب سرخ نگاه میکنید. مغز شما، ویژگیهای مختلف این سیب را در نواحی مختلف پردازش میکند: رنگ سرخ در قشر بینایی V4، شکل گرد در قشر تمپورال تحتانی، و موقعیت فضایی در قشر آهیانهای. اما شما، یک سیب واحد را ادراک میکنید — نه رنگ و شکل و موقعیت را بهصورت جدا. پرسش این است: مغز چگونه این ویژگیهای پراکنده را به یک ادراک واحد متصل میکند؟
کریستوف فون درمالسبرگ و ولفرام سینگر (۱۹۸۹) و فرانسیس کریک و کریستوف کوخ (۱۹۹۰) فرضیهای ارائه کردند: نورونهایی که یک شیء واحد را نمایش میدهند، فعالیت خود را در یک پنجره زمانی مشخص هماهنگ میکنند. به عبارت دیگر، همزمانی شلیک (Synchrony) بهعنوان کد اتصال عمل میکند: نورونهایی که همزمان شلیک میکنند، به یک شیء تعلق دارند؛ نورونهایی که غیرهمزمان شلیک میکنند، به اشیاء مختلف تعلق دارند. این همزمانی، در قالب ریتمهای عصبی تجلی مییابد.
مثال مدیریتی: مشکل اتصال در سازمانهای چندواحدی
فرض کنید یک شرکت، سه واحد تخصصی دارد: واحد مالی، واحد بازاریابی، و واحد تولید. هر واحد، اطلاعات تخصصی خود را پردازش میکند. اما تصمیم نهایی — مثلاً ورود به یک بازار جدید — نیازمند ادغام اطلاعات هر سه واحد است. اگر این واحدها هماهنگ نباشند، هر یک تصمیم متفاوتی میگیرد و تصمیم سازمانی منسجم نمیشود. حالا ریتمهای عصبی، دقیقاً معادل جلسات هماهنگی در سازمان هستند: پنجرههای زمانی که در آنها، واحدهای مختلف اطلاعات خود را تبادل میکنند و به تصمیم واحد میرسند.
ریتمهای مغزی: از کجا میآیند؟
پس ریتمهای مغزی، از تعامل بین نورونهای تحریکی و مهاری نشأت میگیرند. نورونهای تحریکی، سیگنالهای مثبت میفرستند و فعالیت را افزایش میدهند. نورونهای مهاری، سیگنالهای منفی میفرستند و فعالیت را کاهش میدهند. تعادل بین این دو، یک حلقه بازخورد ایجاد میکند که منجر به نوسان میشود — دقیقاً مانند نوسان یک ترازو که بهطور مداوم بین چپ و راست حرکت میکند.
نورونهای مهاری، بهویژه سلولهای گلابیشکل (Basket Cells) و سلولهای شمعدانیشکل (Chandelier Cells)، نقش کلیدی در تولید ریتم دارند. این نورونها، سریع شلیک میکنند و گروههای بزرگ از نورونهای تحریکی را مهار میکنند. وقتی نورونهای تحریکی فعال میشوند، نورونهای مهاری نیز فعال میشوند و چند میلیثانیه بعد، نورونهای تحریکی را خاموش میکنند. این چرخه، بهطور مداوم تکرار میشود و ریتم تولید میکند.
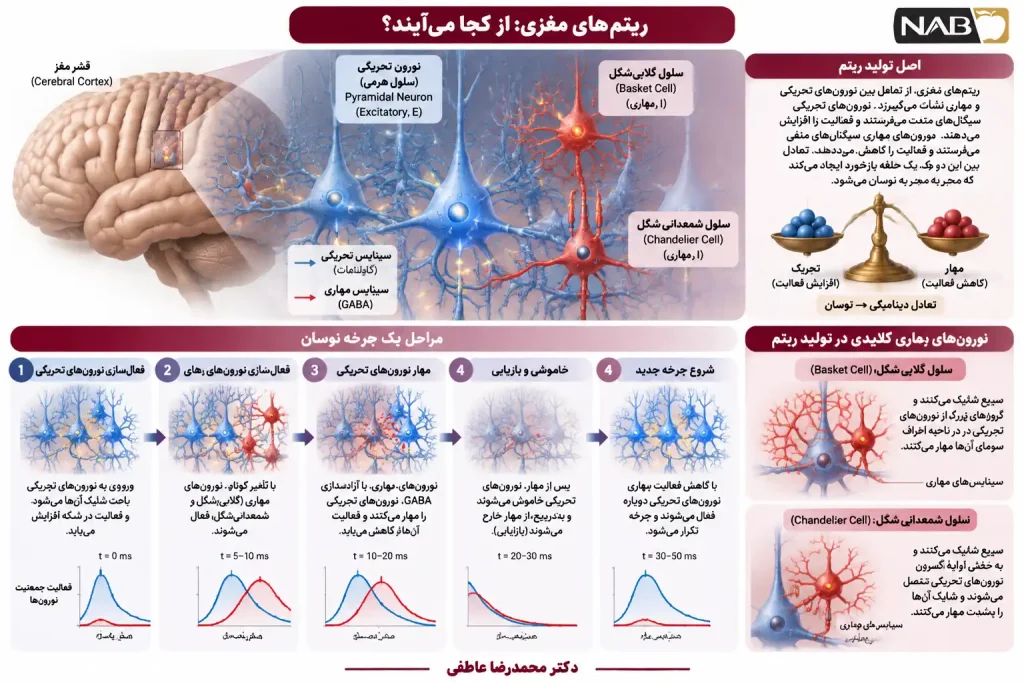
مثال مدیریتی: تولید ریتم در سازمان بهعنوان چرخه برنامهریزی-اجرا-بازخورد
در یک سازمان، چرخههای برنامهریزی (تحریک)، اجرا (فعالیت)، و بازخورد (مهار) ریتم سازمانی را شکل میدهند. برنامهریزی سالانه، اهداف را تعیین میکند (تحریک). اجرای فصلی، اهداف را پیش میبرد (فعالیت). بازخورد سهماهه، انحرافات را اصلاح میکند (مهار). این چرخه، ریتم سازمان را ایجاد میکند و هماهنگی بین واحدها را ممکن میسازد. نورونهای مهاری، دقیقاً معادل سیستم بازخورد سازمان هستند: آنها اجازه نمیدهند که فعالیت از حد فراتر رود و ریتم را حفظ میکنند.
۳.۵.۲ ریتمهای گاما و تتا
مغز، طیف وسیعی از ریتمها را تولید میکند که هر یک، فرکانس و نقش متفاوتی دارند. دو ریتم مهم که در محاسبات عصبی نقش کلیدی ایفا میکنند، ریتم گاما و ریتم تتا هستند.
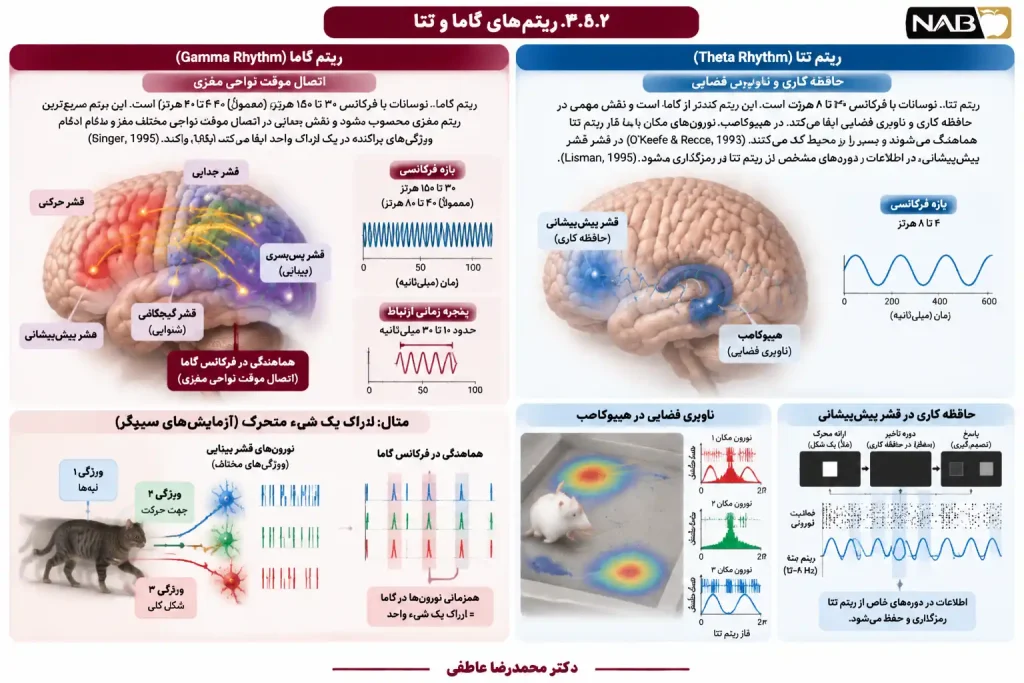
ریتم گاما: اتصال موقت نواحی مغزی
حالا ریتم گاما (Gamma Rhythm)، نوسانات با فرکانس ۳۰ تا ۱۵۰ هرتز (معمولاً ۴۰ تا ۸۰ هرتز) است. این ریتم، سریعترین ریتم مغزی محسوب میشود و نقش حیاتی در اتصال موقت (Temporal Binding) نواحی مختلف مغز ایفا میکند.
وولفرام سینگر و همکاران (۱۹۹۵) در آزمایشهای کلاسیک خود روی گربهها نشان دادند که وقتی یک شیء متحرک به میدان بینایی ارائه میشود، نورونهای قشر بینایی که به ویژگیهای مختلف آن شیء (مثل لبهها و جهت حرکت) پاسخ میدهند، فعالیت خود را در فرکانس گاما هماهنگ میکنند. این هماهنگی، به قشر اجازه میدهد که ویژگیهای پراکنده را به یک ادراک واحد متصل کند. سینگر این پدیده را «اتصال از طریق همزمانی» (Binding by Synchrony) نامید.
ریتم گاما، پنجرههای زمانی بسیار کوتاه (حدود ۱۰ تا ۳۰ میلیثانیه) ایجاد میکند که در آنها، نورونهای مختلف میتوانند اطلاعات را تبادل کنند. این پنجرهها، دقیقاً معادل لحظات کوتاه هماهنگی در جلسات سازمانی هستند: لحظاتی که همه حاضر هستند و تصمیم گرفته میشود.
مثال مدیریتی: ریتم گاما بهعنوان جلسات هماهنگی سریع
فرض کنید یک سازمان چابک، جلسات روزانه ۱۵ دقیقهای برگزار میکند که در آنها، نمایندگان تمام واحدها حضور دارند و بهسرعت اطلاعات را تبادل میکنند. این جلسات، دقیقاً معادل ریتم گاما هستند: پنجرههای زمانی کوتاه که در آنها، واحدهای مختلف هماهنگ میشوند و تصمیمات سریع میگیرند. اگر این جلسات وجود نداشته باشند، واحدها پراکنده میمانند و تصمیمات منسجم نمیشوند. ریتم گاما، مکانیزم عصبی همین هماهنگی سریع است.
ریتم تتا: حافظه کاری و ناوبری فضایی
این ریتم تتا (Theta Rhythm)، نوسانات با فرکانس ۴ تا ۸ هرتز است. این ریتم، کندتر از گاما است و نقش متفاوتی ایفا میکند: حافظه کاری (Working Memory) و ناوبری فضایی (Spatial Navigation).
در هیپوکامپ، ریتم تتا در طول حرکت حیوان در محیط ظاهر میشود. نورونهای مکان(Place Cells) — که به مکانهای خاص در محیط پاسخ میدهند — فعالیت خود را با فاز ریتم تتا هماهنگ میکنند. این هماهنگی، به حیوان اجازه میدهد که مسیر خود را در محیط ردیابی کند و حافظه فضایی را شکل دهد.
در حافظه کاری، ریتم تتا بهعنوان مکانیزمی برای حفظ اطلاعات در ذهن عمل میکند. جان لیزمن و همکاران (۱۹۹۵) نشان دادند که نورونهای قشر پیشپیشانی، اطلاعات مربوط به یک محرک را در دورههای مشخص از ریتم تتا رمزگذاری میکنند. این رمزگذاری، به مغز اجازه میدهد که اطلاعات را برای چند ثانیه در حافظه کاری نگه دارد — توانایی که برای تفکر، برنامهریزی، و تصمیمگیری حیاتی است.
مثال مدیریتی: ریتم تتا بهعنوان حافظه کاری سازمانی
فرض کنید یک مدیر، در طول یک جلسه چند ساعته، باید اطلاعات متعددی را در ذهن نگه دارد: بودجه، زمانبندی، نظرات کارکنان، و اهداف استراتژیک. این توانایی، معادل حافظه کاری مغز است. ریتم تتا، مکانیزم عصبی همین حافظه است: اطلاعات مختلف را در دورههای مختلف ریتم رمزگذاری میکند تا تداخل کم شود و بازیابی آسان باشد. مدیرانی که حافظه کاری قویتری دارند، معمولاً در تصمیمگیریهای پیچیده موفقتر هستند.
۳.۵.۳ همگامسازی و ارتباط بینناحیهای
همگامسازی (Synchronization) ریتمهای مغزی، مکانیزمی برای ارتباط بینناحیهای (Inter-regional Communication) است. پاسکال فریز (۲۰۰۵) در نظریه «ارتباط از طریق همدوسی عصبی» (Communication Through Coherence) پیشنهاد کرد که دو ناحیه مغزی، زمانی میتوانند اطلاعات را تبادل کنند که فعالیت آنها در یک فرکانس مشخص هماهنگ باشد. اگر دو ناحیه در فرکانسهای مختلف نوسان کنند، اطلاعات بین آنها منتقل نمیشود — دقیقاً مانند دو رادیو که روی فرکانسهای مختلف تنظیم شدهاند و نمیتوانند با هم صحبت کنند.
همگامسازی، نه فقط در یک ناحیه، بلکه بین نواحی دور مغز رخ میدهد. برای مثال، قشر پیشپیشانی و قشر آهیانهای، در طول حافظه کاری، فعالیت خود را در فرکانس گاما هماهنگ میکنند. این هماهنگی، اطلاعات حسی را با اهداف شناختی ادغام میکند و تصمیمگیری آگاهانه را ممکن میسازد.
نقش مهار سیناپسی در تولید ریتم
مهار سیناپسی، نقش کلیدی در تولید و تنظیم ریتمهای مغزی دارد. نورونهای مهاری، با شلیک سریع و دقیق خود، پنجرههای زمانی مشخصی برای فعالیت نورونهای تحریکی ایجاد میکنند. بدون مهار، نورونهای تحریکی بهطور بیوقفه فعال میماندند و ریتم منظمی شکل نمیگرفت. مهار، مانند یک رهبر ارکستر است که زمان ورود و خروج هر گروه سازی را تعیین میکند.
مثال مدیریتی: همگامسازی بینناحیهای در سازمانهای ماتریسی
در یک سازمان ماتریسی، تیمهای مختلف (مالی، بازاریابی، فناوری) باید برای یک پروژه مشترک هماهنگ شوند. اگر این تیمها در زمانهای مختلف جلسه بگذارند و اطلاعات را با فرمتهای مختلف تبادل کنند، هماهنگی رخ نمیدهد و پروژه شکست میخورد. همگامسازی ریتمهای مغزی، دقیقاً معادل هماهنگی زمانی و فرمت ارتباطی بین تیمهای سازمانی است. بدون همگامسازی، ارتباط مؤثر غیرممکن است.
۳.۵.۴ کوپلاژ متقابل فرکانسی (Cross-Frequency Coupling)
ریتمهای مغزی، بهصورت مستقل از هم عمل نمیکنند؛ آنها با یکدیگر تعامل دارند. کوپلاژ متقابل فرکانسی (Cross-Frequency Coupling, CFC) به تعامل بین ریتمهای مختلف فرکانسی اشاره دارد. مهمترین نوع CFC، کوپلاژ فاز-دامنه (Phase-Amplitude Coupling) است: فاز یک ریتم کند (مانند تتا)، دامنه یک ریتم سریع (مانند گاما) را تنظیم میکند.
کانولتی و نایت (۲۰۱۰) نشان دادند که در قشر مغز، فاز ریتم تتا تعیین میکند که کدام دورههای ریتم گاما قویتر ظاهر شوند. این تعامل، به مغز اجازه میدهد که اطلاعات را در زمان مشخص رمزگذاری کند: ریتم تتا، زمینه کلی (مثلاً کدام محرک مهم است) را تعیین میکند؛ ریتم گاما، جزئیات (مثل ویژگیهای محرک) را رمزگذاری میکند.
CFC، مکانیزمی برای ادغام اطلاعات در مقیاسهای زمانی مختلف است. اطلاعات کند (مانند زمینه یک جمله) با ریتم تتا رمزگذاری میشود؛ اطلاعات سریع (مانند کلمات یک جمله) با ریتم گاما رمزگذاری میگردد. CFC، این دو سطح اطلاعات را به هم مرتبط میکند.
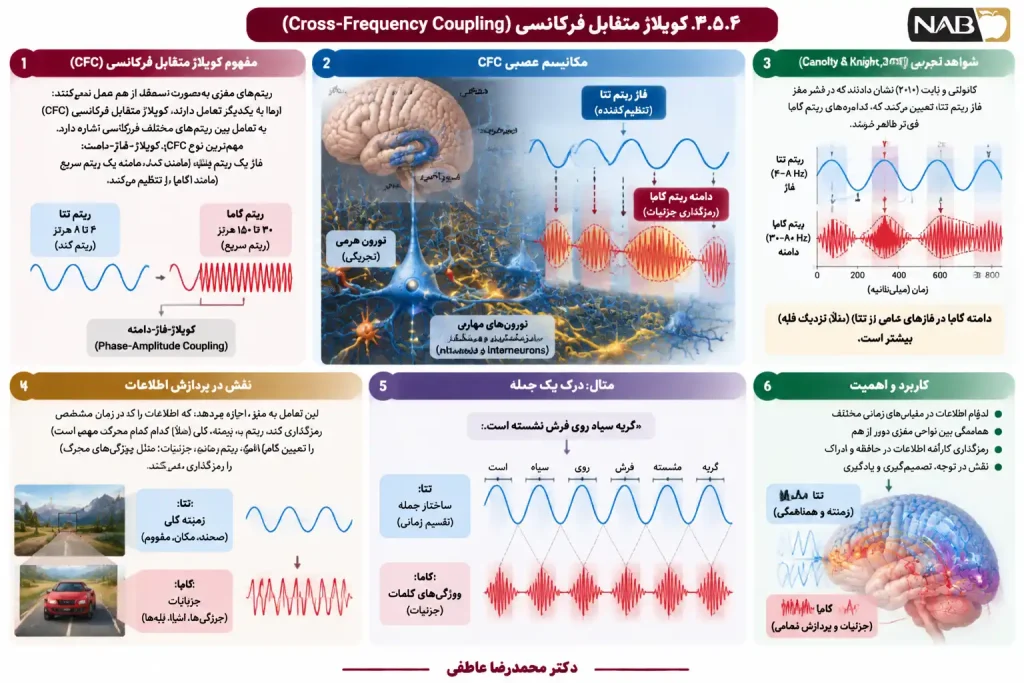
مثال مدیریتی: کوپلاژ متقابل فرکانسی در برنامهریزی استراتژیک
در برنامهریزی استراتژیک، سازمان دو سطح اطلاعات را ادغام میکند: چشمانداز بلندمدت (که کند تغییر میکند) و اقدامات کوتاهمدت (که سریع تغییر میکنند). چشمانداز، معادل ریتم تتا است: زمینه کلی را تعیین میکند. اقدامات، معادل ریتم گاما است: جزئیات را اجرا میکنند. کوپلاژ بین این دو، هماهنگی استراتژی و عملیات را ممکن میسازد. سازمانهایی که فقط به یکی از این دو سطح توجه میکنند، یا در جزئیات غرق میشوند یا چشمانداز را از دست میدهند.
۳.۵.۵ مثال گسترده: نقش ریتم گاما در ادراک بصری و اتصال ویژگیهای شیء
برای درک عمیق تر نقش ریتمهای مغزی، بیایید یک مثال کامل را مرور کنیم: ادراک بصری یک شیء و نقش ریتم گاما در اتصال ویژگیهای آن.
صورت مسئله: فرض کنید به یک توپ قرمز در حال حرکت روی یک زمینه سبز نگاه میکنید. مغز شما، ویژگیهای مختلف این توپ را در نواحی مختلف پردازش میکند:
- رنگ قرمز در قشر بینایی V4.
- شکل گرد در قشر تمپورال تحتانی.
- حرکت در قشر بینایی V5/MT.
- موقعیت فضایی در قشر آهیانهای.
پرسش: مغز چگونه این ویژگیهای پراکنده را به یک ادراک واحد متصل میکند؟
پاسخ: ریتم گاما.
- مرحله ۱: پردازش موازی ویژگیها. هر ناحیه تخصصی، ویژگی خود را پردازش میکند. نورونهای V4، رنگ قرمز را تشخیص میدهند. نورونهای MT، حرکت را تشخیص میدهند. نورونهای تمپورال، شکل گرد را تشخیص میدهند.
- مرحله ۲: همگامسازی گاما. نورونهایی که به یک شیء واحد تعلق دارند، فعالیت خود را در فرکانس گاما (حدود ۴۰ هرتز) هماهنگ میکنند. نورونهای V4، MT، و تمپورال که همه به توپ قرمز متصل هستند، در یک پنجره زمانی مشخص (حدود ۲۵ میلیثانیه) شلیک میکنند. نورونهایی که به زمینه سبز متعلق هستند، در پنجرههای زمانی دیگر شلیک میکنند.
- مرحله ۳: اتصال از طریق همزمانی. نورونهای قشر پیشپیشانی و نواحی انجمنی، الگوی همزمانی گاما را تشخیص میدهند و ویژگیهای همزمان را به یک شیء واحد متصل میکنند. نتیجه: شما یک توپ قرمز در حال حرکت روی زمینه سبز میبینید — نه رنگ قرمز جدا، حرکت جدا، و شکل جدا.
شواهد تجربی: سینگر و همکاران (۱۹۹۵) با ثبت همزمان فعالیت نورونهای قشر بینایی گربه، نشان دادند که نورونهای مختلف که به یک شیء متحرک پاسخ میدهند، در فرکانس گاما هماهنگ میشوند. فرایز و همکاران (۲۰۰۱) نیز نشان دادند که همگامسازی گاما بین نواحی مختلف قشر، با ادراک آگاهانه مرتبط است.
مثال مدیریتی: اتصال ویژگیها در تصمیمگیری سازمانی
فرض کنید یک شرکت خودروسازی میخواهد تصمیم بگیرد که آیا یک مدل جدید را به بازار عرضه کند. ویژگیهای مختلف این تصمیم در واحدهای مختلف پردازش میشود:
- واحد مالی: هزینه تولید و حاشیه سود.
- واحد بازاریابی: تقاضای بازار و رقبا.
- واحد فنی: قابلیت تولید و زمان عرضه.
- واحد قانونی: استانداردها و مقررات.
تصمیم نهایی، نیازمند اتصال این ویژگیهای پراکنده به یک تصمیم واحد است. ریتم گاما در مغز، معادل جلسات هماهنگی سریع در سازمان است: لحظاتی که نمایندگان تمام واحدها حضور دارند و اطلاعات را در یک پنجره زمانی مشخص تبادل میکنند. اگر این جلسات وجود نداشته باشند، هر واحد تصمیم جداگانه میگیرد و تصمیم سازمانی منسجم نمیشود.
جمعبندی بخش ۳.۵: چه چیزی از ریتمهای مغزی میآموزیم؟
در این بخش، ریتمهای مغزی را بهعنوان مکانیزم هماهنگی زمانی و ارتباط بینناحیهای بررسی کردیم. آنچه دیدیم، نقش حیاتی نوسانات در محاسبات عصبی است:
۱. ریتمها، مشکل اتصال را حل میکنند. همزمانی شلیک نورونها در فرکانس گاما، به مغز اجازه میدهد که ویژگیهای پراکنده یک شیء را به یک ادراک واحد متصل کند.
۲. ریتمهای مختلف، نقشهای مختلفی دارند. گاما برای اتصال موقت و پردازش سریع؛ تتا برای حافظه کاری و ناوبری فضایی؛ آلفا برای مهار اطلاعات نامرتبط؛ دلتا برای خواب عمیق و تثبیت حافظه.
۳. همگامسازی، کلید ارتباط بینناحیهای است. دو ناحیه مغزی، زمانی میتوانند اطلاعات را تبادل کنند که در یک فرکانس مشخص هماهنگ باشند.
۴. کوپلاژ متقابل فرکانسی، ادغام اطلاعات در مقیاسهای زمانی مختلف را ممکن میسازد. فاز ریتم کند، دامنه ریتم سریع را تنظیم میکند و زمینه را با جزئیات مرتبط میسازد.
۵. مهار سیناپسی، ریتمها را تولید و تنظیم میکند. نورونهای مهاری، پنجرههای زمانی مشخصی برای فعالیت نورونهای تحریکی ایجاد میکنند و ریتم را منظم میسازند.
درس نهایی برای مدیران: ریتمهای مغزی به ما میآموزند که هماهنگی زمانی، بهاندازه محتوای اطلاعات مهم است. سازمانهایی که جلسات منظم، فرمتهای ارتباطی مشخص، و سیستمهای بازخورد دقیق دارند، هماهنگتر و مؤثرتر از سازمانهایی هستند که ارتباطات پراکنده و بدون ریتم دارند. ریتم، نظم، و هماهنگی — اینها کلیدهای ادراک منسجم و تصمیمگیری مؤثر هستند، چه در مغز و چه در سازمان.
منابع بخش ۳.۵
Buzsáki, G. (2006). Rhythms of the brain. Oxford University Press.
Buzsáki, G., & Draguhn, A. (2004). Neuronal oscillations in cortical networks. Science, *304*(5679), 1926–1929. https://doi.org/10.1126/science.1099745
Canolty, R. T., & Knight, R. T. (2010). The functional role of cross-frequency coupling. Trends in Cognitive Sciences, *14*(11), 506–515. https://doi.org/10.1016/j.tics.2010.09.001
Crick, F., & Koch, C. (1990). Towards a neurobiological theory of consciousness. Seminars in the Neurosciences, *2*, 263–275.
Engel, A. K., Fries, P., & Singer, W. (2001). Dynamic predictions: Oscillations and synchrony in top-down processing. Nature Reviews Neuroscience, *2*(10), 704–716. https://doi.org/10.1038/35094565
Fries, P. (2005). A mechanism for cognitive dynamics: Neuronal communication through neuronal coherence. Trends in Cognitive Sciences, *9*(10), 474–480. https://doi.org/10.1016/j.tics.2005.08.011
Fries, P., Reynolds, J. H., Rorie, A. E., & Desimone, R. (2001). Modulation of oscillatory neuronal synchronization by selective visual attention. Science, *291*(5508), 1560–1563. https://doi.org/10.1126/science.1055465
Gray, C. M., König, P., Engel, A. K., & Singer, W. (1989). Oscillatory responses in cat visual cortex exhibit inter-columnar synchronization which reflects global stimulus properties. Nature, *338*(6213), 334–337. https://doi.org/10.1038/338334a0
Herrmann, C. S., & Knight, R. T. (2001). Mechanisms of human attention: Event-related potentials and oscillations. Neuroscience & Biobehavioral Reviews, *25*(6), 465–476. https://doi.org/10.1016/S0149-7634(01)00027-6
Jensen, O., & Lisman, J. E. (2005). Hippocampal sequence-encoding driven by a cortical multi-item working memory buffer. Trends in Neurosciences, *28*(2), 67–72. https://doi.org/10.1016/j.tins.2004.12.001
Lisman, J. E., & Idiart, M. A. P. (1995). Storage of 7 ± 2 short-term memories in oscillatory subcycles. Science, *267*(5203), 1512–1515. https://doi.org/10.1126/science.7878473
Singer, W. (1999). Neuronal synchrony: A versatile code for the definition of relations? Neuron, *24*(1), 49–65. https://doi.org/10.1016/S0896-6273(00)80821-1
Singer, W., & Gray, C. M. (1995). Visual feature integration and the temporal correlation hypothesis. Annual Review of Neuroscience, *18*, 555–586. https://doi.org/10.1146/annurev.ne.18.030195.002551
von der Malsburg, C. (1981). The correlation theory of brain function (Internal Report 81-2). Max Planck Institute for Biophysical Chemistry.
von der Malsburg, C. (1995). Binding in models of perception and brain function. Current Opinion in Neurobiology, *5*(4), 520–526. https://doi.org/10.1016/0959-4388(95)80014-X
Varela, F., Lachaux, J. P., Rodriguez, E., & Martinerie, J. (2001). The brainweb: Phase synchronization and large-scale integration. Nature Reviews Neuroscience, *2*(4), 229–239. https://doi.org/10.1038/35067550
Wang, X. J. (2010). Neurophysiological and computational principles of cortical rhythms in cognition. Physiological Reviews, *90*(3), 1195–1268. https://doi.org/10.1152/physrev.00035.2008
۳.۶ کدگذاری عصبی: چگونه اطلاعات در مغز نمایش داده میشوند؟
مسئله آغازین: فرض کنید یک مدیرعامل هستید و از شما میپرسند: «وقتی مشتریان شما از یک محصول ناراضی هستند، این نارضایتی در ذهن آنها چگونه نمایش داده میشود؟» ممکن است پاسخ دهید: «با کلمات.» اما کلمات، فقط بازنمایی بیرونی نارضایتی هستند. در ذهن مشتری، نارضایتی، یک تجربه حسی و هیجانی است که در الگوهای فعالیت نورونی رمزگذاری شده است. اما دقیقاً چه الگویی؟ آیا مغز، نارضایتی را با تعداد شلیک نورونها نشان میدهد؟ با زمان دقیق شلیک؟ با الگوی فعالیت گروهی از نورونها؟ یا ترکیبی از همه اینها؟
این پرسش، به مبحث بنیادین کدگذاری عصبی (Neural Coding) مربوط میشود: مغز چگونه اطلاعات را نمایش میدهد؟ پاسخ این پرسش، نه فقط برای درک ادراک، حافظه، و تصمیمگیری حیاتی است، بلکه الهامبخش طراحی شبکههای عصبی مصنوعی نیز بوده است. در این بخش، سه نظریه اصلی کدگذاری عصبی — کدگذاری نرخ شلیک، کدگذاری زمانی، و کدگذاری جمعیتی — را بررسی میکنیم و میبینیم که چگونه هر یک، جنبهای متفاوت از پردازش اطلاعات در مغز را توضیح میدهد.
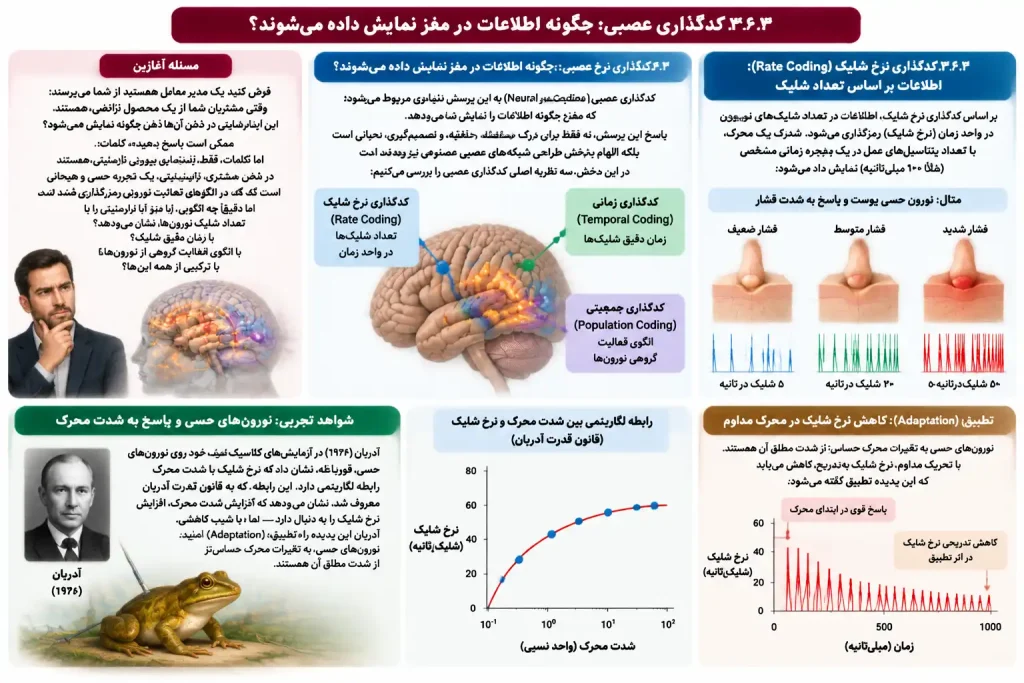
۳.۶.۱ کدگذاری نرخ شلیک (Rate Coding): اطلاعات بر اساس تعداد شلیک
کدگذاری نرخ شلیک (Rate Coding)، قدیمیترین و سادهترین نظریه کدگذاری عصبی است. بر اساس این نظریه، اطلاعات در تعداد شلیکهای نورون در واحد زمان (نرخ شلیک) رمزگذاری میشود. به عبارت دیگر، شدت یک محرک، با تعداد پتانسیلهای عمل در یک پنجره زمانی مشخص (مثلاً ۱۰۰ میلیثانیه) نمایش داده میشود.
برای درک این مفهوم، یک مثال ساده بزنیم. فرض کنید یک نورون حسی در پوست شما، به شدت فشار روی پوست پاسخ میدهد. اگر فشار ضعیف باشد، نورون با نرخ پایین (مثلاً ۵ شلیک در ثانیه) شلیک میکند. حالا اگر فشار متوسط باشد، نرخ شلیک افزایش مییابد (مثلاً ۲۰ شلیک در ثانیه). اگر فشار شدید باشد، نرخ شلیک بیشتر میشود (مثلاً ۵۰ شلیک در ثانیه). بنابراین، نرخ شلیک، رمز شدت محرک است.
شواهد تجربی: نورونهای حسی و پاسخ به شدت محرک
آدریان (۱۹۲۶) در آزمایشهای کلاسیک خود روی نورونهای حسی قورباغه، نشان داد که نرخ شلیک با شدت محرک رابطه لگاریتمی دارد. این رابطه، که به قانون قدرت آدریان معروف شد، نشان میدهد که افزایش شدت محرک، افزایش نرخ شلیک را به دنبال دارد — اما با شیب کاهشی. آدریان این پدیده را «تطبیق» (Adaptation) نامید: نورونهای حسی، به تغییرات محرک حساستر از شدت مطلق آن هستند.
مثال مدیریتی: کدگذاری نرخ شلیک در سازمان
در یک سازمان، شدت یک مشکل (مثلاً نارضایتی مشتری) میتواند با تعداد گزارشها یا تعداد شکایات در واحد زمان نمایش داده شود. اگر در یک ماه، ۵ شکایت ثبت شود، مشکل خفیف است. اگر ۵۰ شکایت ثبت شود، مشکل جدی است. این دقیقاً کدگذاری نرخ شلیک است: تعداد شکایات (نرخ)، شدت مشکل (اطلاعات) را نمایش میدهد. مدیران با پایش نرخ شکایات، میتوانند شدت مشکلات را تشخیص دهند و اولویتبندی کنند.
مزایا و محدودیتهای کدگذاری نرخ
مزایا:
۱. سادگی: کدگذاری نرخ، مفهومی ساده و قابل اندازهگیری است. نرخ شلیک را میتوان بهراحتی با شمارش تعداد پتانسیلهای عمل در یک پنجره زمانی محاسبه کرد.
۲. مقاومت به نویز: چون اطلاعات در تعداد شلیک در یک پنجره زمانی رمزگذاری میشود، نویزهای تصادفی در زمان دقیق شلیک، تأثیر کمی بر نرخ کلی دارند. این مقاومت، کدگذاری نرخ را برای سیستمهای بیولوژیکی که با نویز مواجهند، مناسب میسازد.
۳. پشتیبانی تجربی گسترده: اکثر نورونهای حسی و حرکتی، حداقل تا حدی، از کدگذاری نرخ استفاده میکنند.
محدودیتها:
۱. کندی: کدگذاری نرخ، به پنجره زمانی نیاز دارد (حداقل چند ده میلیثانیه( تا تعداد شلیکها شمارش شود. این کندی، برای پاسخهای سریع )مانند فرار از خطر( مناسب نیست.
۲. از دست دادن اطلاعات زمانی: کدگذاری نرخ، زمان دقیق شلیکها را نادیده میگیرد. اما زمان دقیق شلیک، میتواند حامل اطلاعات باشد (همانطور که در کدگذاری زمانی خواهیم دید).
۳. ناتوانی در رمزگذاری روابط: کدگذاری نرخ، روابط بین نورونها (مانند همزمانی) را نمایش نمیدهد. اما این روابط، برای ادراک اشیاء پیچیده حیاتی هستند.
مثال مدیریتی: محدودیت کدگذاری نرخ در تحلیل سازمانی
فرض کنید یک سازمان، فقط بر اساس تعداد شکایات (نرخ) تصمیم میگیرد. اگر تعداد شکایات ثابت باشد، سازمان تصور میکند که مشکلی وجود ندارد. اما الگوی زمانی شکایات، میتواند حامل اطلاعات مهمی باشد: اگر همه شکایات در یک هفته متمرکز باشند، این نشانه یک بحران ناگهانی است. اگر شکایات بهطور یکنواخت در طول ماه پخش باشند، این نشانه یک مشکل ساختاری است. کدگذاری نرخ، این الگوی زمانی را نادیده میگیرد — و همین، محدودیت آن است.
۳.۶.۲ کدگذاری زمانی (Temporal Coding): اطلاعات بر اساس زمان دقیق شلیک
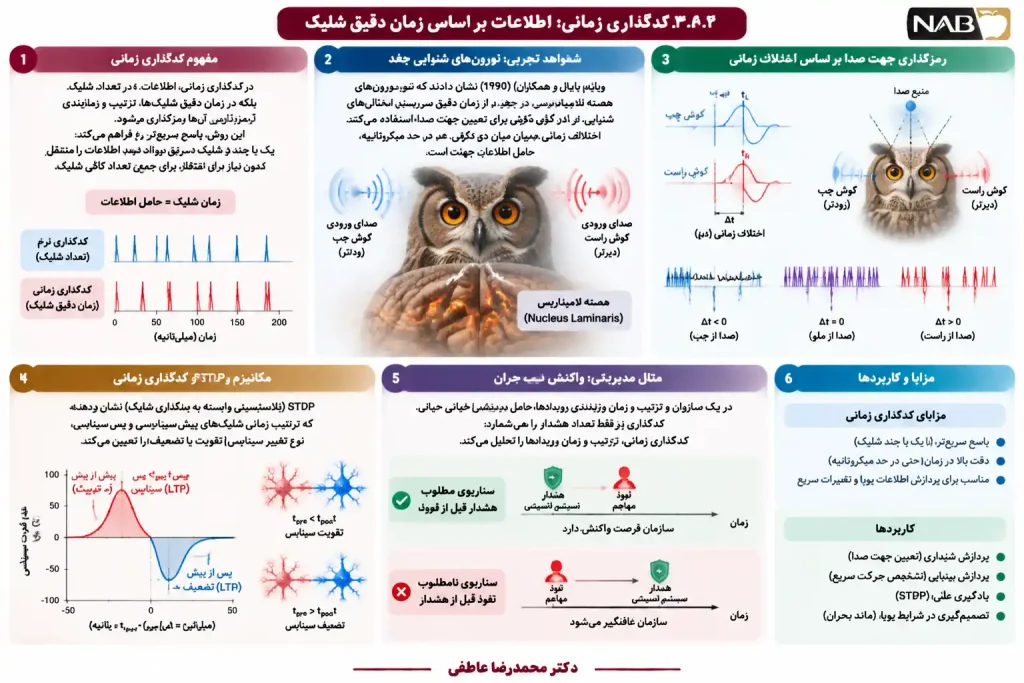
کدگذاری زمانی (Temporal Coding) نظریهای است که اطلاعات را نه در تعداد شلیک، بلکه در زمان دقیق شلیکها رمزگذاری میکند. بر اساس این نظریه، ترتیب و زمانبندی شلیکهای نورونها، حامل اطلاعات است. کدگذاری زمانی، مزیت پاسخ سریعتر را فراهم میکند: یک یا چند شلیک دقیق، میتواند اطلاعات را منتقل کند، بدون نیاز به انتظار برای جمعآوری تعداد کافی شلیک.
شواهد تجربی: نورونهای شنوایی و رمزگذاری زمان دقیق
ویلیام بایال و همکاران (۱۹۹۰) در آزمایشهای خود روی سیستم شنوایی جغد، نشان دادند که نورونهای هسته لامیناریس (Nucleus Laminaris) از زمان دقیق رسیدن سیگنالهای شنوایی از دو گوش برای تعیین جهت صدا استفاده میکنند. اختلاف زمانی میان دو گوش، حتی در حد میکروثانیه، حامل اطلاعات جهت است. این دقت زمانی خیرهکننده، نشان میدهد که مغز میتواند از زمان بهعنوان حامل اطلاعات استفاده کند.
مکانیزم STDP و کدگذاری زمانی
همانطور که در بخش ۳.۴ دیدیم، STDP (پلاستیسیتی وابسته به زمان شلیک) نشان میدهد که ترتیب زمانی شلیکهای پیشسیناپسی و پسسیناپسی، نوع تغییر سیناپس (تقویت یا تضعیف) را تعیین میکند. این مکانیزم، پایه یادگیری کدگذاری زمانی است: مغز، روابط علّی بین رویدادها را بر اساس ترتیب زمانی آنها یاد میگیرد.
مثال مدیریتی: کدگذاری زمانی در واکنش به بحران
فرض کنید یک سازمان با بحران مواجه میشود (مثلاً حمله سایبری). ترتیب و زمانبندی رویدادها، حامل اطلاعات حیاتی است:
- اگر هشدار سیستم امنیتی، قبل از نفوذ مهاجم رخ دهد، سازمان فرصت واکنش دارد.
- اگر نفوذ مهاجم، قبل از هشدار سیستم رخ دهد، سازمان غافلگیر میشود.
کدگذاری نرخ، فقط تعداد هشدارها را میشمارد؛ کدگذاری زمانی، ترتیب و زمان هشدارها را تحلیل میکند. برای مدیران، این درس به این معناست که زمانبندی رویدادها، بهاندازه خود رویدادها مهم است.
مزایا و محدودیتهای کدگذاری زمانی
مزایا:
۱. سرعت بالا: کدگذاری زمانی، با یک یا چند شلیک دقیق، اطلاعات را منتقل میکند. این سرعت، برای پاسخهای سریع (مانند رفلکسها) حیاتی است.
۲. ظرفیت اطلاعاتی بالاتر: زمان دقیق شلیک، فضای بیشتری برای رمزگذاری اطلاعات فراهم میکند.
۳. رمزگذاری روابط علّی: ترتیب زمانی شلیکها، روابط علّی را نمایش میدهد — چیزی که کدگذاری نرخ قادر به آن نیست.
محدودیتها:
۱. حساسیت به نویز: زمان دقیق شلیک، بهراحتی تحت تأثیر نویز قرار میگیرد. نویز تصادفی، میتواند ترتیب شلیکها را تغییر دهد و اطلاعات را مخدوش کند.
۲. پیچیدگی رمزگشایی: رمزگشایی کدگذاری زمانی، بسیار پیچیدهتر از کدگذاری نرخ است. مغز باید دقیقاً بداند که کدام شلیک، چه اطلاعاتی را منتقل میکند.
۳. نیاز به همگامسازی دقیق: کدگذاری زمانی، نیازمند همگامسازی دقیق بین نورونها است. بدون همگامسازی، زمان نسبی شلیکها بیمعنا میشود.
مثال مدیریتی: محدودیت کدگذاری زمانی در سازمانهای پرنویز
در یک سازمان پرنویز (با اطلاعات متضاد و شایعات متعدد)، کدگذاری زمانی کارآمد نیست، زیرا نویز، ترتیب رویدادها را مخدوش میکند. در چنین شرایطی، سازمان بهتر است بر کدگذاری نرخ (تعداد گزارشها) تکیه کند. این نشان میدهد که مغز نیز باید بین کدگذاری نرخ و زمان تعادل برقرار کند — بسته به شرایط محیطی.
۳.۶.۳ کدگذاری جمعیتی (Population Coding): اطلاعات بر اساس الگوی فعالیت گروهی
کدگذاری جمعیتی (Population Coding) نظریهای است که اطلاعات را نه در فعالیت یک نورون منفرد، بلکه در الگوی فعالیت گروهی از نورونها رمزگذاری میکند. بر اساس این نظریه، هر نورون منفرد، فقط بخشی از اطلاعات را منتقل میکند؛ اطلاعات کامل، در الگوی همکاری نورونها نهفته است.
شواهد تجربی: رمزگذاری جهت حرکت در قشر حرکتی
اپوستولوس گئورگوپولوس و همکاران (۱۹۸۶) در آزمایشهای کلاسیک خود روی قشر حرکتی میمون، نشان دادند که نورونهای منفرد، به جهتهای مختلف حرکت با شدتهای مختلف پاسخ میدهند. هر نورون، یک جهت ترجیحی (Preferred Direction) دارد که بیشترین پاسخ را میدهد؛ اما به جهتهای مجاور نیز، با شدت کمتر، پاسخ میدهد. جهت واقعی حرکت، از ترکیب وزنی پاسخ همه نورونها بازیابی میشود.
گئورگوپولوس این پدیده را «مدل جمعیتی» (Population Vector) نامید. در این مدل، هر نورون، یک بردار در جهت ترجیحی خود است، با طول متناسب با نرخ شلیک آن. بردار جمعیتی (مجموع بردارهای نورونها)، جهت واقعی حرکت را نشان میدهد. این مدل، دقیقاً نشان میدهد که اطلاعات، در الگوی جمعی نورونها رمزگذاری شده است، نه در یک نورون منفرد.
مثال مدیریتی: کدگذاری جمعیتی در تصمیمگیری گروهی
فرض کنید یک کمیته سرمایهگذاری، درباره یک پروژه تصمیم میگیرد. هر عضو کمیته، یک نظر متفاوت دارد: عضو الف بیشتر به بازده مالی توجه دارد؛ عضو ب بیشتر به ریسک توجه دارد؛ عضو ج بیشتر به همراستایی استراتژیک توجه دارد. تصمیم نهایی، از ترکیب وزنی نظرات همه اعضا بهدست میآید. این دقیقاً کدگذاری جمعیتی است: اطلاعات کامل (تصمیم درست)، در الگوی همکاری اعضا نهفته است، نه در نظر یک عضو منفرد. سازمانهایی که به تنوع نظرات ارزش میدهند، معمولاً تصمیمات بهتری میگیرند.
مکانیزم ریاضی کدگذاری جمعیتی
فرض کنید N نورون داریم که هر یک، جهت ترجیحی θi و نرخ شلیک ri دارد. بردار جمعیتی به این صورت محاسبه میشود:
که در آن u(θi) بردار واحد در جهت θi است. جهت بازیابیشده،
است. این فرمول نشان میدهد که اطلاعات ( جهت حرکت)، در الگوی فعالیت جمعی نورونها رمزگذاری شده است.
مزایا و محدودیتهای کدگذاری جمعیتی
مزایا:
۱. دقت بالاتر: ترکیب اطلاعات از نورونهای متعدد، دقت بازیابی اطلاعات را افزایش میدهد.
۲. مقاومت به خطا: اگر یک نورون خراب شود، اطلاعات کامل از دست نمیرود — نورونهای دیگر میتوانند جبران کنند.
۳. ظرفیت بالاتر: کدگذاری جمعیتی، ظرفیت اطلاعاتی بسیار بالاتری از کدگذاری تکنورونی دارد.
محدودیتها:
۱. نیاز به نورونهای متعدد: کدگذاری جمعیتی، نیازمند گروههای بزرگ از نورونها است — که هزینه متابولیکی بالایی دارد.
۲. پیچیدگی رمزگشایی: رمزگشایی اطلاعات از الگوی جمعیتی، نیازمند مکانیزمهای پیچیده در نواحی بالاتر مغز است.
۳. همبستگی بین نورونها: اگر نورونها همبستگی بالایی داشته باشند، اطلاعات اضافی کمتری منتقل میشود.
مثال مدیریتی: کدگذاری جمعیتی در نظرسنجی سازمانی
فرض کنید یک سازمان، نظرسنجی رضایت کارکنان انجام میدهد. اگر فقط یک سؤال بپرسد («آیا از شرکت راضی هستید؟»)، اطلاعات محدودی بهدست میآورد. اما اگر دهها سؤال مختلف بپرسد (درباره حقوق، محیط کار، فرصتهای رشد، مدیریت، و غیره)، تصویر کاملتری از رضایت کارکنان بهدست میآورد. این دقیقاً کدگذاری جمعیتی است: اطلاعات کامل (رضایت واقعی)، در الگوی پاسخها به سؤالات متعدد نهفته است، نه در پاسخ به یک سؤال منفرد.
۳.۶.۴ همزیستی کدگذاری نرخ و زمان
تا اینجا، سه نظریه کدگذاری عصبی را بهصورت جداگانه بررسی کردیم. اما واقعیت این است که مغز، نه از یکی از این نظریهها بهتنهایی، بلکه از ترکیب آنها استفاده میکند. کدگذاری عصبی، یک پدیده چندوجهی است که بسته به نوع اطلاعات، ناحیه مغز، و وظیفه شناختی، ممکن است از نرخ، زمان، یا جمعیت استفاده کند.
شواهد تجربی: همزیستی نرخ و زمان در قشر بینایی
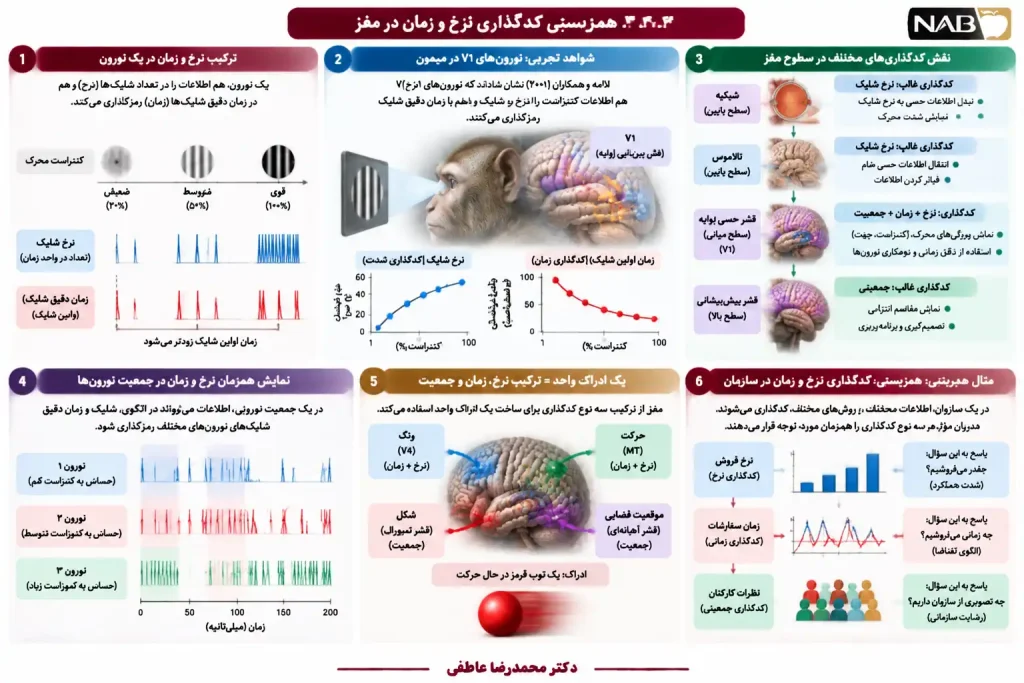
ویکتور لامه و همکاران (۲۰۰۱) در آزمایشهای خود روی قشر بینایی میمون، نشان دادند که نورونهای V1 هم اطلاعات را با نرخ شلیک رمزگذاری میکنند و هم با زمان دقیق شلیک. نرخ شلیک، شدت محرک )مثلاً کنتراست( را نشان میدهد؛ زمان دقیق اولین شلیک، اطلاعات درباره زمان شروع محرک را منتقل میکند. مغز، هر دو نوع اطلاعات را بهطور همزمان استفاده میکند.
همزیستی در سطوح مختلف پردازش
کدگذاری نرخ و زمان، ممکن است در سطوح مختلف پردازش مغز نقش متفاوتی داشته باشند:
- سطوح پایین (مانند شبکیه و تالاموس): کدگذاری نرخ غالب است، زیرا اطلاعات حسی خام به نرخ شلیک نورونها تبدیل میشود.
- سطوح میانی (مانند قشر حسی اولیه): کدگذاری زمانی و جمعیتی نقش بیشتری پیدا میکند، زیرا اطلاعات پیچیدهتر (مانند ویژگیهای محرک) نیازمند دقت زمانی و همکاری نورونها است.
- سطوح بالا (مانند قشر پیشپیشانی): کدگذاری جمعیتی غالب است، زیرا اطلاعات انتزاعی (مانند مفاهیم و تصمیمات) در الگوهای توزیعشده نورونها رمزگذاری میشود.
مثال مدیریتی: همزیستی کدگذاری نرخ و زمان در سازمان
در یک سازمان، اطلاعات مختلف به روشهای مختلف کدگذاری میشوند:
- نرخ فروش (تعداد محصولات فروختهشده در ماه): کدگذاری نرخ — شدت عملکرد فروش را نشان میدهد.
- زمان ورود سفارشات (ترتیب زمانی سفارشات): کدگذاری زمانی — الگوی تقاضا را نشان میدهد.
- نظرات کارکنان (الگوی پاسخها به نظرسنجی): کدگذاری جمعیتی — تصویر کامل رضایت سازمانی را نشان میدهد.
مدیران مؤثر، هر سه نوع کدگذاری را بهطور همزمان مورد توجه قرار میدهند: نرخ فروش (چقدر میفروشیم؟)، زمان سفارشات (چه زمانی میفروشیم؟)، و نظرات کارکنان (چه تصویری از سازمان داریم؟).
۳.۶.۵ مثال گسترده: چگونگی رمزگذاری یک تصویر در قشر بینایی
برای جمعبندی این بخش، بیایید یک مثال کامل را مرور کنیم: چگونگی رمزگذاری یک تصویر در قشر بینایی — از لبهها تا اشیاء پیچیده.
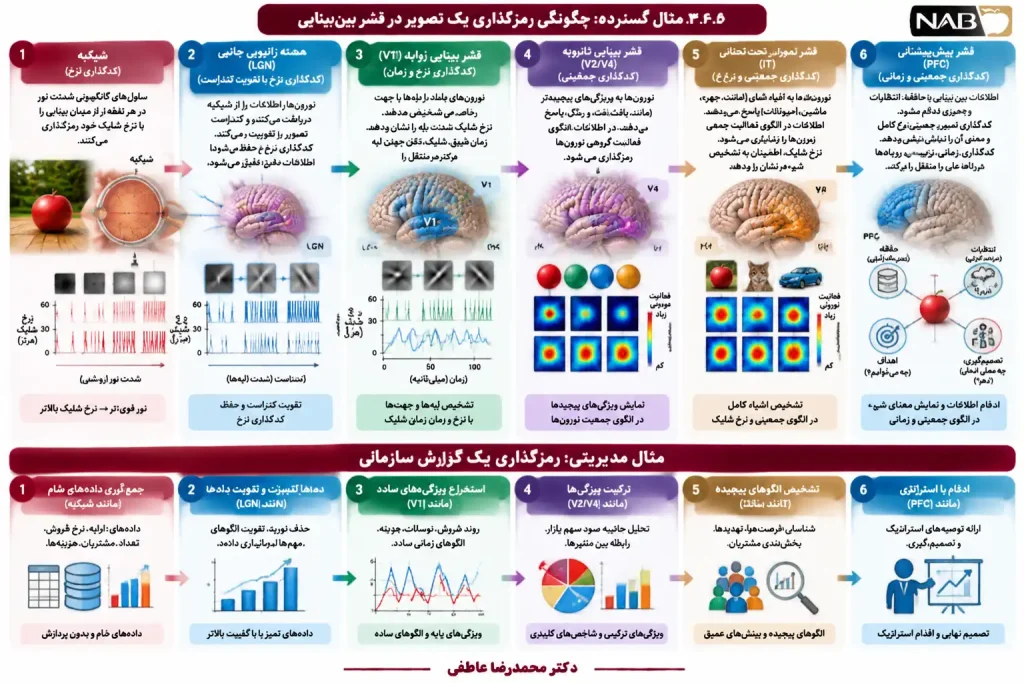
مرحله ۱: شبکیه — کدگذاری نرخ
در شبکیه، سلولهای گانگلیونی، شدت نور در هر نقطه از میدان بینایی را با نرخ شلیک خود رمزگذاری میکنند. نور قویتر، نرخ شلیک بالاتر. این کدگذاری نرخ، اطلاعات خام تصویر را نمایش میدهد.
مرحله ۲: — LGN کدگذاری نرخ با تقویت کنتراست
در هسته زانویی جانبی (LGN)، نورونها اطلاعات را از شبکیه دریافت میکنند و کنتراست تصویر را تقویت میکنند. کدگذاری نرخ حفظ میشود، اما اطلاعات دقیقتر میشود.
مرحله ۳: — V1 کدگذاری نرخ و زمان
در قشر بینایی اولیه (V1)، نورونهای ساده، لبهها با جهت خاص را تشخیص میدهند. نرخ شلیک، شدت لبه را نشان میدهد؛ زمان دقیق شلیک، دقت جهت لبه را منتقل میکند. نورونهای پیچیده، اطلاعات را از چندین نورون ساده ادغام میکنند و ناوردایی نسبت به موقعیت ایجاد میکنند.
مرحله ۴: V2/V4 — کدگذاری جمعیتی
در نواحی بالاتر (V2 و V4)، نورونها به ویژگیهای پیچیدهتر (مانند بافت، رنگ، و شکل) پاسخ میدهند. اطلاعات، نه در یک نورون، بلکه در الگوی فعالیت گروهی نورونها رمزگذاری میشود. کدگذاری جمعیتی، تصویر کامل را از ویژگیهای پراکنده بازیابی میکند.
مرحله ۵: قشر تمپورال تحتانی —(IT) کدگذاری جمعیتی و نرخ
در قشر تمپورال تحتانی (IT)، نورونها به اشیاء کامل (مانند چهره، ماشین، حیوانات) پاسخ میدهند. اطلاعات، در الگوی فعالیت جمعی نورونها رمزگذاری میشود. نرخ شلیک، اطمینان شبکه به تشخیص شیء را نشان میدهد. کدگذاری جمعیتی، تصویر کامل را از ویژگیهای پراکنده بازیابی میکند.
مرحله ۶: قشر پیشپیشانی — کدگذاری جمعیتی و زمانی
در قشر پیشپیشانی، اطلاعات بینایی با اطلاعات دیگر (مانند حافظه، انتظارات، و اهداف) ادغام میشود. کدگذاری جمعیتی، تصویر کامل و معنای آن را نمایش میدهد. کدگذاری زمانی، ترتیب رویدادها و روابط علّی را منتقل میکند.
مثال مدیریتی: رمزگذاری یک گزارش سازمانی
فرض کنید یک تحلیلگر میخواهد یک گزارش درباره عملکرد سازمان تهیه کند. مراحل رمزگذاری به این صورت است:
- جمعآوری دادههای خام (مانند شبکیه): نرخ فروش، تعداد مشتریان، هزینهها.
- پاکسازی و تقویت دادهها (مانند LGN): حذف نویز، تقویت الگوهای مهم.
- استخراج ویژگیهای ساده (مانند V1): روند فروش، نوسانات هزینه.
- ترکیب ویژگیها (مانند V2/V4): تحلیل حاشیه سود، سهم بازار.
- تشخیص الگوهای پیچیده (مانند IT): شناسایی فرصتها و تهدیدها.
- ادغام با استراتژی (مانند قشر پیشپیشانی): ارائه توصیههای استراتژیک.
این مثال نشان میدهد که رمزگذاری اطلاعات در مغز، فرآیندی سلسلهمراتبی است که از کدگذاری نرخ در سطوح پایین شروع میشود و به کدگذاری جمعیتی و زمانی در سطوح بالا میرسد.
جمعبندی بخش ۳.۶: چه چیزی از کدگذاری عصبی میآموزیم؟
در این بخش، سه نظریه اصلی کدگذاری عصبی را بررسی کردیم و دیدیم که مغز، نه از یکی از آنها بهتنهایی، بلکه از ترکیب آنها استفاده میکند:
۱. کدگذاری نرخ: اطلاعات در تعداد شلیک در واحد زمان رمزگذاری میشود. ساده، مقاوم به نویز، اما کند و فاقد اطلاعات زمانی.
۲. کدگذاری زمانی: اطلاعات در زمان دقیق شلیک رمزگذاری میشود. سریع، ظرفیت بالا، اما حساس به نویز و پیچیده برای رمزگشایی.
۳. کدگذاری جمعیتی: اطلاعات در الگوی فعالیت گروهی نورونها رمزگذاری میشود. دقیق، مقاوم به خطا، اما نیازمند نورونهای متعدد و مکانیزمهای پیچیده رمزگشایی.
۴. همزیستی: مغز، بسته به نوع اطلاعات و سطح پردازش، از ترکیب این نظریهها استفاده میکند. سطوح پایین، بیشتر نرخ؛ سطوح میانی، نرخ و زمان؛ سطوح بالا، جمعیت و زمان.
۵. الهام برای شبکههای مصنوعی: شبکههای عصبی مصنوعی، عمدتاً از کدگذاری نرخ استفاده میکنند (مقادیر فعالسازی نورونها). اما تحقیقات جدید، به سمت شبکههای اسپایکی (Spiking Neural Networks) حرکت کرده است که از کدگذاری زمانی و جمعیتی الهام **میگیرند.
درس نهایی برای مدیران: کدگذاری عصبی به ما میآموزد که اطلاعات، به روشهای مختلف نمایش داده میشود و هیچ روش واحدی، بهترین نیست. سازمانهای مؤثر، باید هم به نرخ (تعداد رخدادها)، هم به زمان (ترتیب رخدادها)، و هم به الگوی جمعی (نظرات گروهی) توجه کنند. تصمیمگیری مؤثر، نیازمند ترکیب این سه سطح اطلاعاتی است — دقیقاً همانطور که مغز انجام میدهد.
منابع بخش ۳.۶
Adrian, E. D. (1926). The impulses produced by sensory nerve endings: Part I. The Journal of Physiology, *61*(1), 49–72. https://doi.org/10.1113/jphysiol.1926.sp002273
Bialek, W., Rieke, F., de Ruyter van Steveninck, R. R., & Warland, D. (1991). Reading a neural code. Science, *252*(5014), 1854–1857. https://doi.org/10.1126/science.2063199
Carr, C. E., & Konishi, M. (1990). A circuit for detection of interaural time differences in the brain stem of the barn owl. Journal of Neuroscience, *10*(10), 3227–3246. https://doi.org/10.1523/JNEUROSCI.10-10-03227.1990
Georgopoulos, A. P., Schwartz, A. B., & Kettner, R. E. (1986). Neuronal population coding of movement direction. Science, *233*(4771), 1416–1419. https://doi.org/10.1126/science.3749885
Gerstner, W., Kistler, W. M., Naud, R., & Paninski, L. (2014). Neuronal dynamics: From single neurons to networks and models of cognition. Cambridge University Press.
Kandel, E. R., Koester, J. D., Mack, S. H., & Siegelbaum, S. A. (2021). Principles of neural science (6th ed.). McGraw-Hill.
Lamme, V. A. F., & Roelfsema, P. R. (2000). The distinct modes of vision offered by feedforward and recurrent processing. Trends in Neurosciences, *23*(11), 571–579. https://doi.org/10.1016/S0166-2236(00)01657-X
Panzeri, S., Brunel, N., Logothetis, N. K., & Kayser, C. (2010). Sensory neural codes using multiplexed temporal scales. Trends in Neurosciences, *33*(3), 111–120. https://doi.org/10.1016/j.tins.2009.12.001
Pouget, A., Dayan, P., & Zemel, R. (2000). Information processing with population codes. Nature Reviews Neuroscience, *1*(2), 125–132. https://doi.org/10.1038/35039062
Rieke, F., Warland, D., de Ruyter van Steveninck, R., & Bialek, W. (1997). Spikes: Exploring the neural code. MIT Press.
Salinas, E., & Sejnowski, T. J. (2001). Correlated neuronal activity and the flow of neural information. Nature Reviews Neuroscience, *2*(8), 539–550. https://doi.org/10.1038/35086012
Shadlen, M. N., & Newsome, W. T. (1998). The variable discharge of cortical neurons: Implications for connectivity, computation, and information coding. Journal of Neuroscience, *18*(10), 3870–3896. https://doi.org/10.1523/JNEUROSCI.18-10-03870.1998
Thorpe, S., Fize, D., & Marlot, C. (1996). Speed of processing in the human visual system. Nature, *381*(6582), 520–522. https://doi.org/10.1038/381520a0
Victor, J. D. (1999). Temporal coding in the visual system. Current Opinion in Neurobiology, *9*(4), 461–465. https://doi.org/10.1016/S0959-4388(99)80069-4
۳.۷ سلولهای گلیا: شرکای فراموششده نورونها
مسئله آغازین: فرض کنید یک مدیرعامل هستید و از شما میپرسند: «در سازمان شما، چه کسی مهمتر است: مدیران یا کارکنان پشتیبانی؟» احتمالاً پاسخ میدهید: «هر دو، اما نقشهای متفاوتی دارند.» در مغز نیز تا دهههای اخیر، نورونها بهعنوان ستارههای اصلی شناخته میشدند و سلولهای گلیا (Glial Cells) بهعنوان سلولهای پشتیبان و غیرقابلتوجه در نظر گرفته میشدند. واژه «گلیا» از کلمه یونانی γλία به معنای «چسب» گرفته شده است — زیرا تصور میشد این سلولها فقط نورونها را کنار هم نگه میدارند. اما تحقیقات چند دهه اخیر، این تصویر را بهکلی دگرگون کرده است. ما امروز میدانیم که گلیا، نه فقط چسب، بلکه شرکای فعال در پردازش اطلاعات، یادگیری، و حافظه هستند. در این بخش، به بررسی سه نوع اصلی گلیا — آستروسیتها، میکروگلیا، و الیگودندروسیتها — میپردازیم و میبینیم که چگونه این سلولها، معادل واحدهای پشتیبانی سازمانی هستند که بدون آنها، هیچ تصمیمی بهدرستی اجرا نمیشود.
۳.۷.۱ آستروسیتها و نقش آنها در یادگیری و حافظه
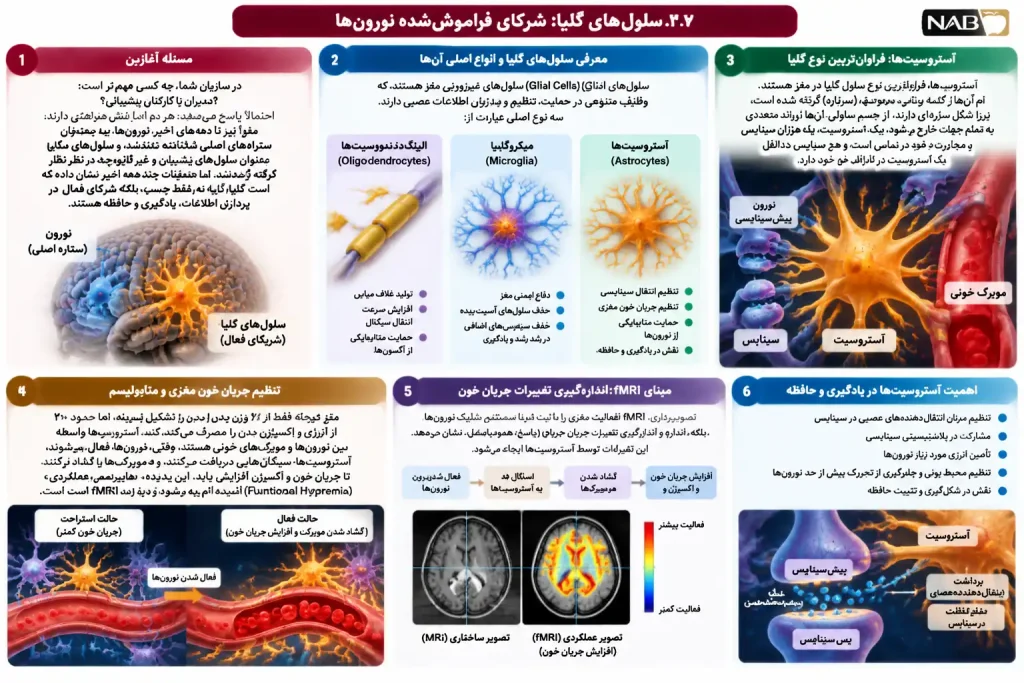
آستروسیتها (Astrocytes)، فراوانترین نوع سلول گلیا در مغز هستند. نام آنها از کلمه یونانی ἄστρον (ستاره) گرفته شده است، زیرا شکل ستارهای دارند: از جسم سلولی آنها، زوائد متعددی به تمام جهات خارج میشود. یک آستروسیت، با هزاران سیناپس در مجاورت خود در تماس است و هر سیناپس، حداقل یک آستروسیت در اطراف خود دارد. این همجواری، به آستروسیتها اجازه میدهد که نقش فعالی در تنظیم انتقال سیناپسی ایفا کنند.
تنظیم جریان خون مغزی و متابولیسم
مغز، اگرچه فقط ۲٪ از وزن بدن را تشکیل میدهد، اما حدود ۲۰٪ از انرژی و اکسیژن بدن را مصرف میکند. این مصرف بالا، نیازمند تنظیم دقیق جریان خون است. آستروسیتها، واسطه بین نورونها و مویرگهای خونی هستند. وقتی نورونها فعال میشوند، آستروسیتها سیگنالهایی دریافت میکنند و مویرگها را گشاد میکنند تا جریان خون و اکسیژن افزایش یابد. این پدیده، «هایپرمی عملکردی» (Functional Hyperemia) نامیده میشود و پایه تصویربرداری fMRI (تصویربرداری تشدید مغناطیسی عملکردی) است. fMRI، فعالیت مغزی را نه با ثبت مستقیم شلیک نورونها، بلکه با اندازهگیری تغییرات جریان خون نشان میدهد — تغییری که آستروسیتها ایجاد میکنند.
مثال مدیریتی: آستروسیتها بهعنوان واحد پشتیبانی سازمانی
در یک سازمان، واحدهای پشتیبانی (منابع انسانی، فناوری اطلاعات، تدارکات) مستقیماً در تصمیمگیری نقش ندارند، اما بدون آنها، هیچ تصمیمی اجرا نمیشود. آستروسیتها دقیقاً همین نقش را در مغز ایفا میکنند: آنها انرژی و منابع لازم برای فعالیت نورونها را فراهم میکنند و محیط را برای پردازش اطلاعات آماده میسازند. اگر واحدهای پشتیبانی از کار بیفتند، مدیران (نورونها) نمیتوانند تصمیمات خود را اجرا کنند. به همین ترتیب، اختلال در آستروسیتها، به نقص در عملکرد نورونها و بیماریهای عصبی منجر میشود.
انتقالدهندههای عصبی و تنظیم سیناپسی
آستروسیتها، گیرندههای نوروترانسمیترها را دارند و میتوانند گلوتامات، GABA، و ATP را دریافت کنند. آنها همچنین، ناقلین (Transporters) گلوتامات را بیان میکنند که نوروترانسمیتر را از شکاف سیناپسی پاک میکنند. این پاکسازی، برای پایان دادن به سیگنال سیناپسی و جلوگیری از تحریک مداوم حیاتی است. علاوه بر این، آستروسیتها میتوانند گلیوترانسمیترها(مانند گلوتامات و ATP) آزاد کنند که بر نورونهای مجاور تأثیر میگذارد. این ارتباط دوطرفه بین نورونها و آستروسیتها، «سیناپس سهگانه» (Tripartite Synapse) نامیده میشود: نورون پیشسیناپسی، نورون پسسیناپسی، و آستروسیت — سه جزء که با هم انتقال سیناپسی را تنظیم میکنند.
تأثیر بر پلاستیسیتی سیناپسی و ریتمهای مغزی
آستروسیتها، نقش کلیدی در پلاستیسیتی سیناپسی دارند. آنها با آزادسازی گلیوترانسمیترها، میتوانند LTP و LTD را تنظیم کنند. آستروسیتها همچنین، غلظت یونهای پتاسیم و کلسیم را در فضای خارج سلولی تنظیم میکنند — که برای تولید ریتمهای مغزی )مانند گاما و تتا( ضروری است. تحقیقات نشان داده است که اختلال در آستروسیتها، به اختلال در ریتمهای مغزی و نقص در حافظه منجر میشود.
مثال گسترده: اختلال عملکرد آستروسیتها و نقص حافظه در بیماری آلزایمر
بیماری آلزایمر، شایعترین بیماری تخریبکننده عصبی است که با از دست دادن حافظه و تواناییهای شناختی مشخص میشود. تحقیقات نشان داده است که آستروسیتها در بیماری آلزایمر دچار اختلال میشوند: آنها گلوتامات را بهدرستی پاک نمیکنند، جریان خون را تنظیم نمیکنند، و گلیوترانسمیترها را نامتعادل آزاد میکنند. این اختلالات، به مرگ نورونها و نقص حافظه منجر میشود. داروهای جدید آلزایمر، نه فقط نورونها، بلکه آستروسیتها را نیز هدف قرار میدهند — نشانهای از اهمیت فزاینده این سلولها در تحقیقات عصبی.
درس مدیریتی: آستروسیتها به ما میآموزند که واحدهای پشتیبانی، نه حاشیهای، بلکه حیاتی هستند. سازمانهایی که به منابع انسانی، فناوری اطلاعات، و تدارکات بیتوجهی میکنند، دقیقاً مانند مغزی عمل میکنند که آستروسیتهای آن مختل شده است: نورونها (مدیران) میخواهند کار کنند، اما انرژی و محیط مناسب وجود ندارد.
۳.۷.۲ میکروگلیا و هرس سیناپسی
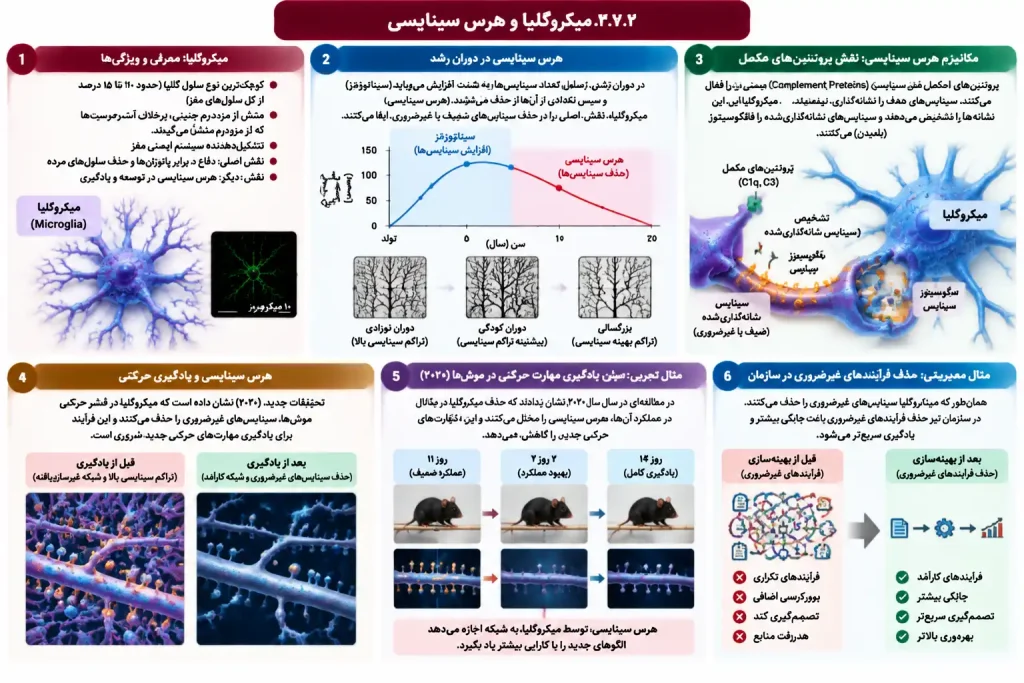
میکروگلیا (Microglia)، کوچکترین نوع سلول گلیا هستند و حدود ۱۰ تا ۱۵ درصد از کل سلولهای مغز را تشکیل میدهند. برخلاف آستروسیتها که از مزودرم منشأ میگیرند، میکروگلیا از مزودرم جنینی منشأ میگیرند و سیستم ایمنی مغز را تشکیل میدهند. نقش اصلی میکروگلیا، دفاع در برابر پاتوژنها و حذف سلولهای مرده است. اما کشف نقش دیگر آنها — هرس سیناپسی — انقلابی در درک ما از توسعه و یادگیری مغز ایجاد کرده است.
هرس سیناپسی در دوران رشد
در دوران رشد مغز، تعداد سیناپسها ابتدا بهشدت افزایش مییابد (فرآیندی به نام سیناپتوژنز)، و سپس تعدادی از آنها حذف میشوند. این حذف، «هرس سیناپسی» (Synaptic Pruning) نامیده میشود. میکروگلیا، نقش اصلی را در این فرآیند ایفا میکنند: آنها سیناپسهای ضعیف یا غیرضروری را تشخیص میدهند و فاگوسیتوز (بلعیدن) میکنند. پروتئینهای مکمل —(Complement Proteins) که سیستم ایمنی را فعال میکنند — نشانهگذاری سیناپسهای هدف را انجام میدهند. میکروگلیا، این نشانهها را تشخیص میدهند و سیناپسهای نشانهگذاریشده را حذف میکنند.
هرس سیناپسی و یادگیری حرکتی
تحقیقات جدید نشان داده است که هرس سیناپسی، نه فقط در دوران رشد، بلکه در بزرگسالان نیز رخ میدهد و نقش مهمی در یادگیری حرکتی دارد. مطالعهای در سال ۲۰۲۰ نشان داد که میکروگلیا در قشر حرکتی موشها، سیناپسهای غیرضروری را حذف میکنند و این فرآیند، برای یادگیری مهارتهای حرکتی جدید ضروری است. حذف سیناپسهای غیرضروری، به شبکه اجازه میدهد که الگوهای جدید را با کارایی بیشتر یاد بگیرد — دقیقاً مانند حذف فرآیندهای غیرضروری در سازمان که باعث چابکی بیشتر میشود.
مثال مدیریتی: هرس سیناپسی بهعنوان بازسازی سازمانی
فرض کنید یک سازمان، سالها فرآیندهای متعددی را ایجاد کرده است که بسیاری از آنها دیگر ضروری نیستند. این فرآیندهای اضافی، مانند سیناپسهای غیرضروری، منابع را مصرف میکنند و چابکی سازمان را کاهش میدهند. هرس سیناپسی در مغز، دقیقاً معادل بازسازی سازمانی (Reengineering) است: حذف فرآیندهای غیرضروری، آزادسازی منابع، و افزایش کارایی. میکروگلیا، واحد بازسازی مغز هستند.
۳.۷.۳ الیگودندروسیتها و میلینسازی
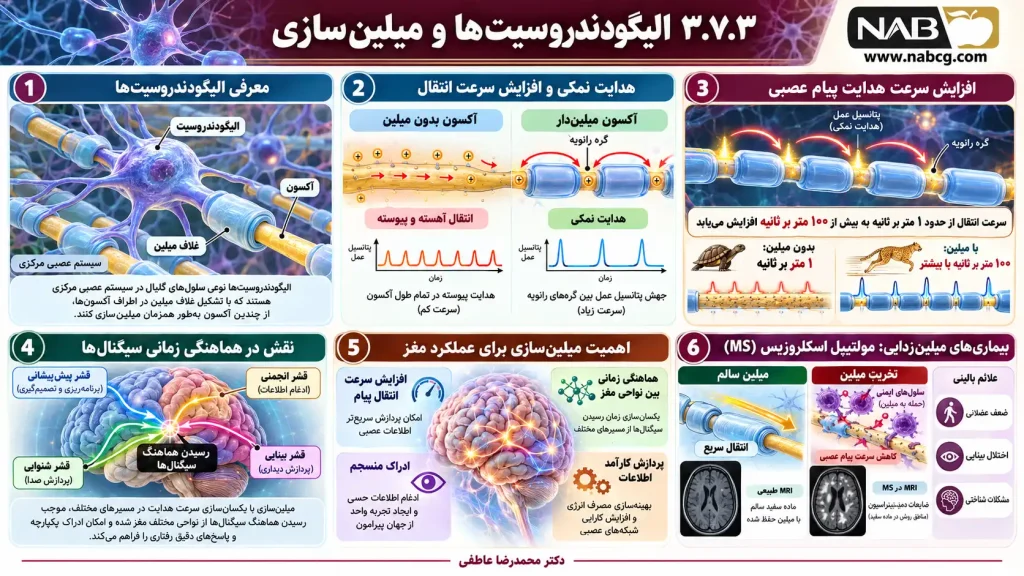
الیگودندروسیتها (Oligodendrocytes)، سلولهای گلیا در سیستم عصبی مرکزی هستند که غلاف میلین را دور آکسونها تشکیل میدهند. میلین، لایه چربی است که عایق الکتریکی محسوب میشود و سرعت انتقال پتانسیل عمل را بهشدت افزایش میدهد. یک الیگودندروسیت، میتواند غلاف میلین را دور چندین آکسون (حدود ۵۰ آکسون) تشکیل دهد.
افزایش سرعت هدایت پیام عصبی
همانطور که در بخش ۳.۲ دیدیم، هدایت نمکی در آکسونهای میلیندار، سرعت انتقال را از ۱ متر بر ثانیه به ۱۰۰ متر بر ثانیه یا بیشتر افزایش میدهد. این افزایش سرعت، برای هماهنگی زمانی سیگنالها در نواحی مختلف مغز حیاتی است. بدون میلین، سیگنالها از نواحی دور (مانند قشر بینایی تا قشر پیشپیشانی) زمان زیادی طول میکشید تا برسند و ادراک منسجم غیرممکن میشد.
نقش در هماهنگی زمانی سیگنالها
الیگودندروسیتها، طول و ضخامت غلاف میلین را تنظیم میکنند. این تنظیم، به هماهنگی زمانی دقیق سیگنالها از نواحی مختلف مغز کمک میکند. برای مثال، سیگنالهای بینایی و شنوایی، باید در یک پنجره زمانی مشخص به قشر انجمنی برسند تا ادراک یکپارچه شکل گیرد. میلینسازی متفاوت در مسیرهای مختلف، این هماهنگی را ممکن میسازد.
بیماریهای میلینزدایی
اختلال در میلینسازی یا تخریب میلین، به بیماریهای میلینزدایی (Demyelinating Diseases) مانند مولتیپل اسکلروزیس (MS) منجر میشود. در MS، سیستم ایمنی به غلاف میلین حمله میکند و سرعت انتقال سیگنالها کاهش مییابد. نتیجه: ضعف عضلانی، اختلال بینایی، و مشکلات شناختی. MS، نشان میدهد که میلین، نه فقط یک عایق، بلکه عنصری حیاتی برای عملکرد صحیح مغز است.
مثال مدیریتی: میلین بهعنوان زیرساخت ارتباطی سازمان
فرض کنید یک سازمان، دفاتر خود را در شهرهای مختلف پراکنده کرده است. اگر ارتباط بین دفاتر از طریق پست سنتی باشد، انتقال اطلاعات روزها طول میکشد. اگر سازمان از فیبر نوری و شبکههای ارتباطی سریع استفاده کند، اطلاعات در کمتر از یک ثانیه منتقل میشوند. میلین، دقیقاً همین نقش را در مغز ایفا میکند: افزایش سرعت ارتباط بین نواحی مختلف و هماهنگی زمانی آنها. سازمانهایی که در زیرساخت ارتباطی خود سرمایهگذاری میکنند، سریعتر و منسجمتر تصمیم میگیرند.
جمعبندی بخش ۳.۷: چه چیزی از گلیا میآموزیم؟
سلولهای گلیا، مدتها نادیده گرفته میشدند، اما امروز میدانیم که نقشهای حیاتی در پردازش اطلاعات، یادگیری، و حافظه دارند:
۱. آستروسیتها: تنظیم جریان خون، متابولیسم، و انتقالدهندههای عصبی. نقش در پلاستیسیتی سیناپسی و ریتمهای مغزی. اختلال آنها به بیماریهایی مانند آلزایمر منجر میشود.
۲. میکروگلیا: هرس سیناپسی در دوران رشد و بزرگسالی. حذف سیناپسهای غیرضروری برای یادگیری مهارتهای جدید.
۳. الیگودندروسیتها: میلینسازی و افزایش سرعت هدایت پیام عصبی. هماهنگی زمانی سیگنالها در نواحی مختلف مغز.
درس نهایی برای مدیران: گلیا به ما میآموزند که موفقیت سازمان، فقط مدیون نورونها (مدیران و تصمیمگیرندگان) نیست؛ بلکه واحدهای پشتیبانی (منابع انسانی، فناوری، تدارکات) نقش کلیدی در ایجاد محیط مناسب، تأمین انرژی، حذف فرآیندهای غیرضروری، و تسریع ارتباطات دارند. سازمانهای مؤثر، به همه اجزا اهمیت میدهند.
۳.۸ نوروژنز بزرگسالان: تولد نورونهای جدید
مسئله آغازین: فرض کنید یک مدیرعامل هستید و از شما میپرسند: «آیا یک سازمان میتواند کارکنان جدید استخدام کند در حالی که فرهنگ و دانش موجود را حفظ میکند؟» پاسخ ممکن است این باشد: «بله، اما با چالشها.» نوروژنز بزرگسالان (Adult Neurogenesis) — تولید نورونهای جدید در مغز بالغ — دقیقاً همین چالش را مطرح میکند. تا دهه ۱۹۹۰، باور غالب این بود که مغز بالغ نمیتواند نورونهای جدید تولید کند. اما تحقیقات انقلابی نشان داد که در برخی نواحی مغز، نورونهای جدید در طول زندگی تولید میشوند و در شبکههای موجود ادغام میگردند. این کشف، درک ما از انعطافپذیری مغز را دگرگون کرد و الهامبخش رویکردهای جدید در یادگیری سازمانی شد.
۳.۸.۱ مقدمه: آیا مغز بالغ نورون جدید تولید میکند؟
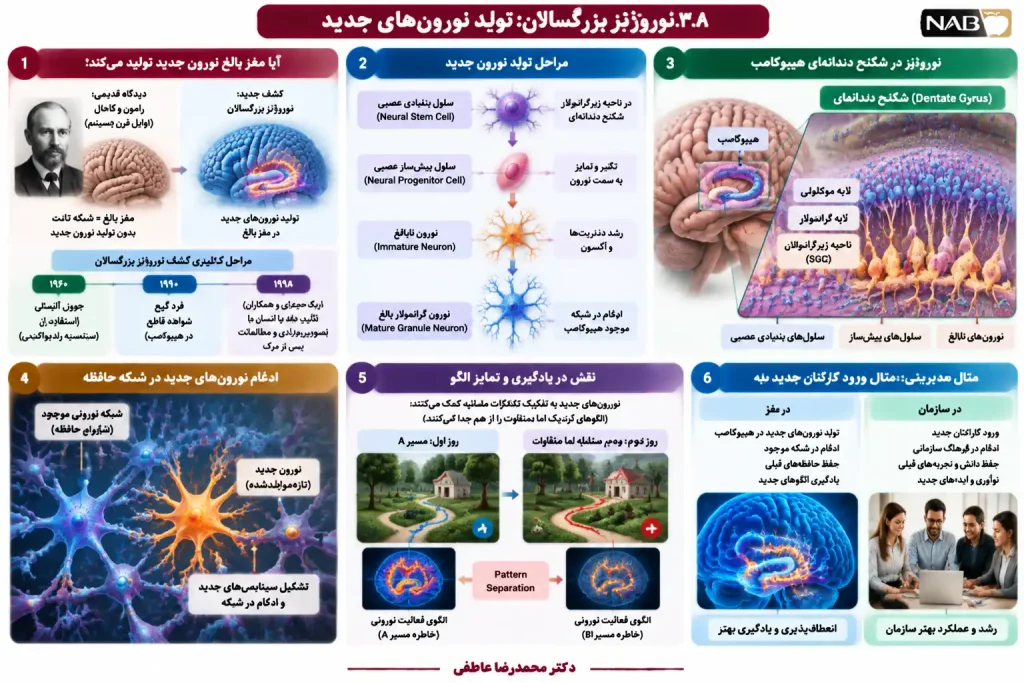
سانتیاگو رامون و کاخال، پدر عصبشناسی مدرن، در اوایل قرن بیستم نظریه «عدم تولید نورون در مغز بالغ» را مطرح کرد. او معتقد بود که مغز، مانند یک دستگاه ثابت، فقط نورونهای موجود را حفظ میکند و نورون جدید تولید نمیکند. این نظریه، دههها مبنای آموزش عصبشناسی بود. اما در دهه ۱۹۶۰، جوزف آلتمن (Joseph Altman) با استفاده از تیمیدین رادیواکتیو (که در سلولهای در حال تقسیم ادغام میشود) نشان داد که نورونهای جدید در هیپوکامپ موشهای بالغ تولید میشوند. نتایج او در آن زمان جدی گرفته نشد، زیرا تکنیکهای آن زمان توانایی تشخیص دقیق نورونهای جدید را نداشتند.
احیای نظریه نوروژنز بزرگسالان
در دهه ۱۹۹۰، فرد گِیج (Fred Gage) و همکارانش در موسسه سالک، با استفاده از تکنیکهای مدرن نشاندار کردن سلولها، بهطور قاطع نشان دادند که نورونهای جدید در شکنج دندانهای هیپوکامپ مغز انسان بالغ تولید میشوند. اریکسن و همکاران (۱۹۹۸) نیز با استفاده از تصویربرداری مغزی و مطالعات پسازمرگ، وجود نوروژنز را در مغز انسان تأیید کردند. امروز، نوروژنز بزرگسالان در دو ناحیه اصلی مغز پستانداران بهخوبی مستند شده است: شکنج دندانهای هیپوکامپ و پیاز بویایی (در جوندگان). در انسان، شواهد قوی برای نوروژنز در شکنج دندانهای هیپوکامپ وجود دارد، اما میزان و اهمیت آن در بزرگسالان هنوز موضوع تحقیقات ادامهدار است.
۳.۸.۲ نوروژنز در شکنج دندانهای هیپوکامپ
شکنج دندانهای (Dentate Gyrus)، بخشی از هیپوکامپ است که نقش کلیدی در حافظه فضایی و تشکیل خاطرات جدید دارد. نوروژنز در این ناحیه، در لایه زیر گرانولار (Subgranular Zone) رخ میدهد، جایی که سلولهای بنیادی عصبی بالغ (Neural Stem Cells) قرار دارند. این سلولها، تقسیم میشوند و سلولهای پیشساز عصبی را تولید میکنند که سپس به نورونهای گرانولار بالغ تبدیل میشوند. نورونهای جدید، سپس در شبکههای موجود هیپوکامپ ادغام میشوند.
نقش در حافظه و یادگیری
نورونهای تازهمتولدشده، ویژگیهای فیزیولوژیکی منحصربهفردی دارند: آنها تحریکپذیرتر از نورونهای بالغ هستند و پلاستیسیتی بالاتری دارند. این ویژگیها، به آنها اجازه میدهد که سریعتر یاد بگیرند و آسانتر در شبکههای موجود ادغام شوند. تحقیقات نشان داده است که نوروژنز در هیپوکامپ، برای تشکیل خاطرات جدید ضروری است. مسدود کردن نوروژنز در موشها، به نقص در حافظه فضایی و تمایز الگو (Pattern Separation) منجر میشود.
ادغام نورونهای جدید در انگرامهای حافظه
نورونهای جدید، پس از تولید، به انگرامهای حافظه(Engrams) — مجموعههای نورونی که یک خاطره را رمزگذاری میکنند — ملحق میشوند. تحقیقات جدید نشان داده است که نورونهای جدید، نقش ویژهای در تمایز خاطرات مشابه دارند. برای مثال، اگر شما هر روز از یک مسیر مشابه اما نه یکسان به سر کار میروید، نورونهای جدید به شما کمک میکنند که این مسیرها را از هم تفکیک کنید و مسیر امروز را با مسیر دیروز اشتباه نگیرید.
مثال مدیریتی: نوروژنز بهعنوان استخدام نیروی جدید در سازمان
فرض کنید یک سازمان، سالها با یک تیم ثابت کار کرده است. این تیم، تجربه زیادی دارد، اما ممکن است در الگوهای ذهنی قدیمی گیر کرده باشد. استخدام نیروی جدید (نوروژنز)، ایدههای تازه و انعطافپذیری بیشتری به سازمان میآورد. نیروهای جدید، مانند نورونهای تازهمتولدشده، تحریکپذیرتر و پلاستیسیتی بالاتری دارند و میتوانند سازمان را در انطباق با شرایط جدید یاری کنند. اما استخدام نیروی جدید، بدون ادغام صحیح در فرهنگ سازمانی، میتواند به تعارض و سردرگمی منجر شود. مغز نیز باید نورونهای جدید را بهدرستی در شبکههای موجود ادغام کند تا حافظه تقویت شود، نه مخدوش.
۳.۸.۳ تأثیر نوروژنز بر تفکیک الگو و انعطافپذیری شناختی
تفکیک الگو (Pattern Separation)، توانایی تمایز بین محرکهای مشابه اما نه یکسان است. برای مثال، توانایی تشخیص تفاوت بین دو چهره مشابه، یا دو مسیر مشابه در شهر. نوروژنز در هیپوکامپ، نقش کلیدی در تفکیک الگو دارد. نورونهای جدید، با ویژگیهای تحریکپذیری بالای خود، به شبکه کمک میکنند که الگوهای مشابه را بهصورت جداگانه رمزگذاری کند. بدون نوروژنز، الگوهای مشابه ممکن است با هم تداخل کنند و حافظه مخدوش شود.
انعطافپذیری شناختی
انعطافپذیری شناختی (Cognitive Flexibility)، توانایی تغییر استراتژی ذهنی در پاسخ به تغییرات محیط است. نوروژنز، با افزایش تنوع نورونها و پلاستیسیتی شبکه، به انعطافپذیری شناختی کمک میکند. تحقیقات نشان داده است که افزایش نوروژنز (مثلاً با ورزش و محیط غنی) با بهبود انعطافپذیری شناختی مرتبط است.
مثال گسترده: نقش نوروژنز هیپوکامپی در یادگیری مسیرهای جدید در محیط شهری
فرض کنید به یک شهر جدید نقل مکان کردهاید و باید مسیرهای جدید را یاد بگیرید. هیپوکامپ شما، با نوروژنز، نورونهای جدید تولید میکند که به شما کمک میکنند مسیرهای مشابه اما متفاوت را از هم تفکیک کنید. نورونهای جدید، مانند نقشهبرداران جدیدی هستند که به تیم نقشهبرداری شهر ملحق میشوند و جزئیات جدید را به نقشه اضافه میکنند. بدون نوروژنز، شما ممکن است مسیر خانه تا سوپرمارکت را با مسیر خانه تا داروخانه اشتباه بگیرید — دقیقاً همان مشکلی که در موشهای بدون نوروژنز مشاهده میشود.
درس مدیریتی: نوروژنز به ما میآموزد که سازمانها نیازمند تزریق مداوم ایدههای جدید، نیروهای جدید، و رویکردهای جدید هستند تا انعطافپذیر بمانند. اما این تزریق، باید بهدرستی مدیریت شود تا به جای اختلال، به تقویت حافظه و توانایی سازمان منجر شود.
جمعبندی بخش ۳.۸: چه چیزی از نوروژنز میآموزیم؟
نوروژنز بزرگسالان، کشفی انقلابی است که نشان میدهد مغز، برخلاف باور قدیمی، پویا و قابل تغییر است:
۱. مغز بالغ، نورون جدید تولید میکند. شکنج دندانهای هیپوکامپ، محل اصلی نوروژنز در مغز انسان بالغ است.
۲. نورونهای جدید، ویژگیهای منحصربهفردی دارند. آنها تحریکپذیرتر و پلاستیسیتی بالاتری دارند و سریعتر یاد میگیرند.
۳. نوروژنز، تفکیک الگو و انعطافپذیری شناختی را افزایش میدهد. نورونهای جدید به تمایز خاطرات مشابه و تغییر استراتژیهای ذهنی کمک میکنند.
۴. نوروژنز، الهامبخش یادگیری سازمانی است. سازمانها میتوانند از نوروژنز الهام بگیرند و با استخدام نیروهای جدید، ایدههای تازه، و رویکردهای نوآورانه، انعطافپذیری خود را افزایش دهند.
درس نهایی برای مدیران: نوروژنز به ما میآموزد که یادگیری و انطباق، فرآیندهایی مادامالعمر هستند. مغز، هر روز نورونهای جدید تولید میکند و شبکههای خود را بازسازی میکند. سازمانهای مؤثر نیز باید همین رویکرد را داشته باشند: یادگیری مستمر، استخدام استعدادهای جدید، و آمادگی برای تغییر.
۳.۹ جمعبندی فصل: چه چیزی از مغز میآموزیم؟
در این فصل، سفری جامع به درون مغز انسان داشتیم — از نورون منفرد تا شبکههای عظیم، از سیناپس تا ریتمهای مغزی، و از گلیا تا نوروژنز. آنچه دیدیم، فراتر از یک درس عصبشناسی بود؛ ما شاهد اصول طراحی بودیم که الهامبخش طراحی شبکههای عصبی مصنوعی و معماری سازمانی مؤثر هستند.
۱. قدرت در سازماندهی است، نه در تعداد. مغز با ۸۶ میلیارد نورون، از اصول ساده تبعیت میکند: سلسلهمراتب، تخصصیافتگی، و پردازش موازی. این اصول، به شبکههای مصنوعی — که بسیار کوچکتر از مغز هستند — اجازه میدهد که کارآمد و مؤثر باشند.
۲. دندریتها، کامپیوترهای غیرخطی هستند. نورون زیستی، فقط یک جمعکننده ساده نیست؛ دندریتهای غیرخطی، توان محاسباتی نورون را بهشدت افزایش میدهند. این کشف، الهامبخش معماریهای جدید مانند نورونهای چندبخشی شده است.
۳. یادگیری، چندمکانیزمی است. مغز نه یک، بلکه چندین مکانیزم یادگیری دارد: هبی، LTP/LTD، STDP، تقویتی، بدون نظارت، و نظارتشده. هر مکانیزم، برای نوع خاصی از یادگیری تخصص یافته است.
۴. ریتمها، هماهنگی را ممکن میسازند. ریتمهای مغزی — گاما، تتا، و غیره — پنجرههای زمانی برای ارتباط مؤثر بین نواحی مغز ایجاد میکنند.
۵. کدگذاری عصبی، چندوجهی است. اطلاعات در مغز، نه فقط با نرخ شلیک، بلکه با زمان دقیق و الگوی جمعی نورونها رمزگذاری میشود.
۶. گلیا، شرکای فراموششده هستند. آستروسیتها، میکروگلیا، و الیگودندروسیتها، نقشهای حیاتی در پردازش اطلاعات، یادگیری، و حافظه دارند.
۷. نوروژنز، پویایی مغز را نشان میدهد. مغز بالغ، نورونهای جدید تولید میکند و شبکههای خود را بازسازی میکند.
درس نهایی برای مدیران: مغز، پیچیدهترین سازمان شناختهشده در جهان است. اصول سازماندهی آن — تخصصیافتگی، پردازش موازی، یادگیری چندلایه، هماهنگی زمانی، و انعطافپذیری — میتوانند راهنمای طراحی سازمانهای مؤثر و سیستمهای هوش مصنوعی سازمانی باشند. سازمانهایی که این اصول را در معماری ارتباطی، فرآیندهای یادگیری، و فرهنگ سازمانی خود پیادهسازی کنند، میتوانند چابکتر، مؤثرتر، و پایدارتر از رقبای خود عمل کنند.
پرسشهای پایان فصل
پرسشهای مفهومی
۱. مدل مککالوک-پیتس چه تفاوت بنیادینی با نورون زیستی دارد؟ چرا این تفاوت برای توسعه شبکههای عصبی مصنوعی حیاتی بود؟
۲. چرا دندریتها را «کامپیوترهای غیرخطی» مینامیم؟ چگونه دندریتها میتوانند عملیات XOR را انجام دهند در حالی که نورون نقطهای قادر به آن نیست؟
۳. قانون هب را توضیح دهید. چگونه LTP و LTD این قانون را در سطح سیناپسی پیادهسازی میکنند؟
۴. دوپامین چگونه بهعنوان سیگنال خطای پیشبینی پاداش (RPE) عمل میکند؟ این مکانیزم چه تفاوتی با سیگنال پاداش ساده دارد؟
۵. ریتمهای مغزی چه نقشی در حل مشکل اتصال (Binding Problem) دارند؟ ریتم گاما و تتا هر یک چه وظیفهای ایفا میکنند؟
۶. تفاوت بین کدگذاری نرخ، کدگذاری زمانی، و کدگذاری جمعیتی چیست؟ هر یک برای چه نوع اطلاعاتی مناسبترند؟
۷. سلولهای گلیا — آستروسیتها، میکروگلیا، و الیگودندروسیتها — هر یک چه نقشهایی در پردازش اطلاعات و یادگیری دارند؟
پرسشهای تحلیلی
۸. نوروژنز بزرگسالان چگونه بر تفکیک الگو و انعطافپذیری شناختی تأثیر میگذارد؟ این پدیده چه درسهایی برای یادگیری سازمانی و مدیریت تغییر دارد؟
۹. مغز از چندین مکانیزم یادگیری (هبی، LTP/LTD، STDP، تقویتی، بدون نظارت، نظارتشده) استفاده میکند. به نظر شما، مزیت این تنوع چیست؟ سازمانها چگونه میتوانند از این تنوع الهام بگیرند؟
۱۰. با توجه به محدودیتهای شبکههای عصبی مصنوعی (مانند فراموشی فاجعهبار، مصرف انرژی بالا، و عدم تفسیرپذیری)، مغز چه راهحلهایی ارائه میدهد؟ الهام از مغز چگونه میتواند به بهبود معماریهای هوش مصنوعی کمک کند؟
منابع فصل ۳
Adrian, E. D. (1926). The impulses produced by sensory nerve endings: Part I. The Journal of Physiology, *61*(1), 49–72. https://doi.org/10.1113/jphysiol.1926.sp002273
Alberts, B., Johnson, A., Lewis, J., Morgan, D., Raff, M., Roberts, K., & Walter, P. (2022). Molecular biology of the cell (7th ed.). W. W. Norton & Company.
Aston-Jones, G., & Cohen, J. D. (2005). An integrative theory of locus coeruleus-norepinephrine function: Adaptive gain and optimal performance. Annual Review of Neuroscience, *28*, 403–450. https://doi.org/10.1146/annurev.neuro.28.061604.135709
Bear, M. F., Connors, B. W., & Paradiso, M. A. (2016). Neuroscience: Exploring the brain (4th ed.). Wolters Kluwer.
Bi, G. Q., & Poo, M. M. (1998). Synaptic modifications in cultured hippocampal neurons: Dependence on spike timing, synaptic strength, and postsynaptic cell type. Journal of Neuroscience, *18*(24), 10464–10472. https://doi.org/10.1523/JNEUROSCI.18-24-10464.1998
Bialek, W., Rieke, F., de Ruyter van Steveninck, R. R., & Warland, D. (1991). Reading a neural code. Science, *252*(5014), 1854–1857. https://doi.org/10.1126/science.2063199
Bittner, K. C., Milstein, A. D., Grienberger, C., Romani, S., & Magee, J. C. (2017). Behavioral time scale synaptic plasticity underlies CA1 place fields. Science, *357*(6355), 1033–1036. https://doi.org/10.1126/science.aan3846
Bliss, T. V. P., & Lømo, T. (1973). Long-lasting potentiation of synaptic transmission in the dentate area of the anaesthetized rabbit following stimulation of the perforant path. The Journal of Physiology, *232*(2), 331–356. https://doi.org/10.1113/jphysiol.1973.sp010273
Bono, J., & Clopath, C. (2017). Modeling somatic and dendritic spike mediated plasticity at the single neuron level. PLoS Computational Biology, *13*(10), e1005731. https://doi.org/10.1371/journal.pcbi.1005731
Branco, T., Clark, B. A., & Häusser, M. (2010). Dendritic discrimination of temporal input sequences in cortical neurons. Science, *329*(5999), 1671–1675. https://doi.org/10.1126/science.1189664
Branco, T., & Häusser, M. (2010). The single dendritic branch as a fundamental functional unit in the nervous system. Current Opinion in Neurobiology, *20*(4), 494–502. https://doi.org/10.1016/j.conb.2010.07.009
Brown, T. H., Kairiss, E. W., & Keenan, C. L. (1990). Hebbian synapses: Biophysical mechanisms and algorithms. Annual Review of Neuroscience, *13*, 475–511. https://doi.org/10.1146/annurev.ne.13.030190.002355
Buzsáki, G. (2006). Rhythms of the brain. Oxford University Press.
Buzsáki, G., & Draguhn, A. (2004). Neuronal oscillations in cortical networks. Science, *304*(5679), 1926–1929. https://doi.org/10.1126/science.1099745
Canolty, R. T., & Knight, R. T. (2010). The functional role of cross-frequency coupling. Trends in Cognitive Sciences, *14*(11), 506–515. https://doi.org/10.1016/j.tics.2010.09.001
Caporale, N., & Dan, Y. (2008). Spike timing-dependent plasticity: A Hebbian learning rule. Annual Review of Neuroscience, *31*, 25–46. https://doi.org/10.1146/annurev.neuro.31.060407.125639
Carr, C. E., & Konishi, M. (1990). A circuit for detection of interaural time differences in the brain stem of the barn owl. Journal of Neuroscience, *10*(10), 3227–3246. https://doi.org/10.1523/JNEUROSCI.10-10-03227.1990
Crick, F., & Koch, C. (1990). Towards a neurobiological theory of consciousness. Seminars in the Neurosciences, *2*, 263–275.
Dan, Y., & Poo, M.-M. (2006). Spike timing-dependent plasticity: From synapse to perception. Physiological Reviews, *86*(3), 1033–1048. https://doi.org/10.1152/physrev.00030.2005
Dayan, P., & Abbott, L. F. (2001). Theoretical neuroscience: Computational and mathematical modeling of neural systems. MIT Press.
Destexhe, A., & Paré, D. (1999). Impact of network activity on the integrative properties of neocortical pyramidal neurons in vivo. Journal of Neurophysiology, *81*(4), 1531–1547. https://doi.org/10.1152/jn.1999.81.4.1531
Doya, K. (2002). Metalearning and neuromodulation. Neural Networks, *15*(4–6), 495–506. https://doi.org/10.1016/S0893-6080(02)00044-8
Eccles, J. C. (1964). The physiology of synapses. Springer.
Engel, A. K., Fries, P., & Singer, W. (2001). Dynamic predictions: Oscillations and synchrony in top-down processing. Nature Reviews Neuroscience, *2*(10), 704–716. https://doi.org/10.1038/35094565
Fatt, P., & Katz, B. (1951). An analysis of the end-plate potential recorded with an intracellular electrode. The Journal of Physiology, *115*(3), 320–370. https://doi.org/10.1113/jphysiol.1951.sp004675
Fiorillo, C. D., Tobler, P. N., & Schultz, W. (2003). Discrete coding of reward probability and uncertainty by dopamine neurons. Science, *299*(5614), 1898–1902. https://doi.org/10.1126/science.1077349
Frey, U., & Morris, R. G. M. (1997). Synaptic tagging and long-term potentiation. Nature, *385*(6616), 533–536. https://doi.org/10.1038/385533a0
Fries, P. (2005). A mechanism for cognitive dynamics: Neuronal communication through neuronal coherence. Trends in Cognitive Sciences, *9*(10), 474–480. https://doi.org/10.1016/j.tics.2005.08.011
Fries, P., Reynolds, J. H., Rorie, A. E., & Desimone, R. (2001). Modulation of oscillatory neuronal synchronization by selective visual attention. Science, *291*(5508), 1560–1563. https://doi.org/10.1126/science.1055465
Fu, M., Yu, X., Lu, J., & Zuo, Y. (2012). Repetitive motor learning induces coordinated formation of clustered dendritic spines in vivo. Nature, *483*(7387), 92–95. https://doi.org/10.1038/nature10844
Georgopoulos, A. P., Schwartz, A. B., & Kettner, R. E. (1986). Neuronal population coding of movement direction. Science, *233*(4771), 1416–1419. https://doi.org/10.1126/science.3749885
Gerstner, W., Kistler, W. M., Naud, R., & Paninski, L. (2014). Neuronal dynamics: From single neurons to networks and models of cognition. Cambridge University Press.
Gidon, A., Zolnik, T. A., Fidzinski, P., Bolduan, F., Papoutsi, A., Poirazi, P., Holtkamp, M., Vida, I., & Larkum, M. E. (2020). A dendritic mechanism for decoding temporal sequences. Science, *367*(6473), 83–87. https://doi.org/10.1126/science.aax6239
Gómez, C. M., Arjona, A., Ruiz-Martínez, F. J., Muñoz-Caracuel, M., Muñoz, V., & Rodriguez-Martínez, E. I. (2026). An event-related potentials account of brain predictive coding. Cognitive Neurodynamics, *20*, Article 10491. https://doi.org/10.1007/s11571-026-10491-7
Govindarajan, A., Israely, I., Huang, S. Y., & Tonegawa, S. (2011). The dendritic branch is the preferred integrative unit for protein synthesis-dependent LTP. Neuron, *69*(1), 132–146. https://doi.org/10.1016/j.neuron.2010.12.008
Gray, C. M., König, P., Engel, A. K., & Singer, W. (1989). Oscillatory responses in cat visual cortex exhibit inter-columnar synchronization which reflects global stimulus properties. Nature, *338*(6213), 334–337. https://doi.org/10.1038/338334a0
Guerguiev, J., Lillicrap, T. P., & Richards, B. A. (2017). Towards deep learning with segregated dendrites. eLife, *6*, e22901. https://doi.org/10.7554/eLife.22901
Hasselmo, M. E. (2006). The role of acetylcholine in learning and memory. Current Opinion in Neurobiology, *16*(6), 710–715. https://doi.org/10.1016/j.conb.2006.09.002
Häusser, M., & Mel, B. (2003). Dendrites: Bug or feature? Current Opinion in Neurobiology, *13*(3), 372–383. https://doi.org/10.1016/S0959-4388(03)00075-8
Hebb, D. O. (1949). The organization of behavior: A neuropsychological theory. Wiley.
Herrmann, C. S., & Knight, R. T. (2001). Mechanisms of human attention: Event-related potentials and oscillations. Neuroscience & Biobehavioral Reviews, *25*(6), 465–476. https://doi.org/10.1016/S0149-7634(01)00027-6
Hodgkin, A. L., & Huxley, A. F. (1952). A quantitative description of membrane current and its application to conduction and excitation in nerve. The Journal of Physiology, *117*(4), 500–544. https://doi.org/10.1113/jphysiol.1952.sp004764
Hopfield, J. J. (1982). Neural networks and physical systems with emergent collective computational abilities. Proceedings of the National Academy of Sciences, *79*(8), 2554–2558. https://doi.org/10.1073/pnas.79.8.2554
Horton, J. C., & Adams, D. L. (2005). The cortical column: A structure without a function. Philosophical Transactions of the Royal Society B: Biological Sciences, *360*(1456), 837–862. https://doi.org/10.1098/rstb.2005.1623
Hubel, D. H., & Wiesel, T. N. (1959). Receptive fields of single neurones in the cat’s striate cortex. The Journal of Physiology, *148*(3), 574–591. https://doi.org/10.1113/jphysiol.1959.sp006308
Hubel, D. H., & Wiesel, T. N. (1962). Receptive fields, binocular interaction and functional architecture in the cat’s visual cortex. The Journal of Physiology, *160*(1), 106–154. https://doi.org/10.1113/jphysiol.1962.sp006837
Ito, M. (2000). Mechanisms of motor learning in the cerebellum. Brain Research, *886*(1–2), 237–245. https://doi.org/10.1016/S0006-8993(00)03142-5
Jensen, O., & Lisman, J. E. (2005). Hippocampal sequence-encoding driven by a cortical multi-item working memory buffer. Trends in Neurosciences, *28*(2), 67–72. https://doi.org/10.1016/j.tins.2004.12.001
Kamin, L. J. (1969). Predictability, surprise, attention, and conditioning. In B. A. Campbell & R. M. Church (Eds.), Punishment and aversive behavior (pp. 279–296). Appleton-Century-Crofts.
Kandel, E. R., Koester, J. D., Mack, S. H., & Siegelbaum, S. A. (2021). Principles of neural science (6th ed.). McGraw-Hill.
Kastellakis, G., Cai, D. J., Mednick, S. C., Silva, A. J., & Poirazi, P. (2015). Synaptic clustering within dendrites: An emerging theory of memory formation. Progress in Neurobiology, *126*, 19–35. https://doi.org/10.1016/j.pneurobio.2014.12.002
Katz, B., & Miledi, R. (1967). The timing of calcium action during neuromuscular transmission. The Journal of Physiology, *189*(3), 535–544. https://doi.org/10.1113/jphysiol.1967.sp008183
Koch, C., Poggio, T., & Torre, V. (1983). Nonlinear interactions in a dendritic tree: Localization, timing, and role in information processing. Proceedings of the National Academy of Sciences, *80*(9), 2799–2802. https://doi.org/10.1073/pnas.80.9.2799
Kohonen, T. (1982). Self-organized formation of topologically correct feature maps. Biological Cybernetics, *43*(1), 59–69. https://doi.org/10.1007/BF00337288
Kording, K. P., & König, P. (2001). Supervised and unsupervised learning with two sites of synaptic integration. Journal of Computational Neuroscience, *11*(3), 207–215. https://doi.org/10.1023/A:1013774117661
Lamme, V. A. F., & Roelfsema, P. R. (2000). The distinct modes of vision offered by feedforward and recurrent processing. Trends in Neurosciences, *23*(11), 571–579. https://doi.org/10.1016/S0166-2236(00)01657-X
Larkum, M. E., Nevian, T., Sandler, M., Polsky, A., & Schiller, J. (2009). Synaptic integration in tuft dendrites of layer 5 pyramidal neurons: A new unifying principle. Science, *325*(5941), 756–760. https://doi.org/10.1126/science.1171958
Lisman, J. E., & Idiart, M. A. P. (1995). Storage of 7 ± 2 short-term memories in oscillatory subcycles. Science, *267*(5203), 1512–1515. https://doi.org/10.1126/science.7878473
Lodish, H., Berk, A., Kaiser, C. A., Krieger, M., Bretscher, A., Ploegh, H., Amon, A., & Martin, K. C. (2021). Molecular cell biology (9th ed.). W. H. Freeman.
London, M., & Häusser, M. (2005). Dendritic computation. Annual Review of Neuroscience, *28*, 503–532. https://doi.org/10.1146/annurev.neuro.28.061604.135703
Losonczy, A., & Magee, J. C. (2006). Integrative properties of radial oblique dendrites in hippocampal CA1 pyramidal neurons. Neuron, *50*(2), 291–307. https://doi.org/10.1016/j.neuron.2006.03.016
Magee, J. C. (2000). Dendritic integration of excitatory synaptic input. Nature Reviews Neuroscience, *1*(3), 181–190. https://doi.org/10.1038/35044552
Magee, J. C., & Grienberger, C. (2020). Synaptic plasticity forms and functions. Annual Review of Neuroscience, *43*, 95–117. https://doi.org/10.1146/annurev-neuro-090919-022842
Malenka, R. C., & Bear, M. F. (2004). LTP and LTD: An embarrassment of riches. Neuron, *44*(1), 5–21. https://doi.org/10.1016/j.neuron.2004.09.012
Markram, H., Lübke, J., Frotscher, M., & Sakmann, B. (1997). Regulation of synaptic efficacy by coincidence of postsynaptic APs and EPSPs. Science, *275*(5297), 213–215. https://doi.org/10.1126/science.275.5297.213
Mel, B. W. (1994). Information processing in dendritic trees. Neural Computation, *6*(6), 1031–1085. https://doi.org/10.1162/neco.1994.6.6.1031
Montague, P. R., Dayan, P., & Sejnowski, T. J. (1996). A framework for mesencephalic dopamine systems based on predictive Hebbian learning. Journal of Neuroscience, *16*(5), 1936–1947. https://doi.org/10.1523/JNEUROSCI.16-05-01936.1996
Mountcastle, V. B. (1957). Modality and topographic properties of single neurons of cat’s somatic sensory cortex. Journal of Neurophysiology, *20*(4), 408–434. https://doi.org/10.1152/jn.1957.20.4.408
Mountcastle, V. B. (1997). The columnar organization of the neocortex. Brain, *120*(4), 701–722. https://doi.org/10.1093/brain/120.4.701
Neher, E., & Sakmann, B. (1976). Single-channel currents recorded from membrane of denervated frog muscle fibres. Nature, *260*(5554), 799–802. https://doi.org/10.1038/260799a0
Nevian, T., Larkum, M. E., Polsky, A., & Schiller, J. (2007). Properties of basal dendrites of layer 5 pyramidal neurons: A direct patch-clamp study. Nature Neuroscience, *10*(2), 206–214. https://doi.org/10.1038/nn1846
Nicholls, J. G., Martin, A. R., Fuchs, P. A., Brown, D. A., Diamond, M. E., & Weisblat, D. A. (2012). From neuron to brain (5th ed.). Sinauer Associates.
Niv, Y., Daw, N. D., Joel, D., & Dayan, P. (2007). Tonic dopamine: Opportunity costs and the control of response vigor. Psychopharmacology, *191*(3), 507–520. https://doi.org/10.1007/s00213-006-0502-4
Panzeri, S., Brunel, N., Logothetis, N. K., & Kayser, C. (2010). Sensory neural codes using multiplexed temporal scales. Trends in Neurosciences, *33*(3), 111–120. https://doi.org/10.1016/j.tins.2009.12.001
Payeur, A., Guerguiev, J., Zenke, F., Richards, B. A., & Naud, R. (2021). Burst-dependent synaptic plasticity can coordinate learning in hierarchical circuits. Nature Neuroscience, *24*(7), 1010–1019. https://doi.org/10.1038/s41593-021-00857-x
Poirazi, P., Brannon, T., & Mel, B. W. (2003). Pyramidal neuron as two-layer neural network. Neuron, *37*(6), 989–999. https://doi.org/10.1016/S0896-6273(03)00149-1
Poirazi, P., & Mel, B. W. (2001). Impact of active dendrites and structural plasticity on the memory capacity of neural tissue. Neuron, *29*(3), 779–796. https://doi.org/10.1016/S0896-6273(01)00252-5
Polsky, A., Mel, B. W., & Schiller, J. (2004). Computational subunits in thin dendrites of pyramidal cells. Nature Neuroscience, *7*(6), 621–627. https://doi.org/10.1038/nn1253
Pouget, A., Dayan, P., & Zemel, R. (2000). Information processing with population codes. Nature Reviews Neuroscience, *1*(2), 125–132. https://doi.org/10.1038/35039062
Purves, D., Augustine, G. J., Fitzpatrick, D., Hall, W. C., LaMantia, A.-S., Mooney, R. D., Platt, M. L., & White, L. E. (2018). Neuroscience (6th ed.). Oxford University Press.
Rakic, P. (2008). Confusing cortical columns. Proceedings of the National Academy of Sciences, *105*(34), 12099–12100. https://doi.org/10.1073/pnas.0807271105
Rall, W. (1964). Theoretical significance of dendritic trees for neuronal input-output relations. In R. F. Reiss (Ed.), Neural theory and modeling (pp. 73–97). Stanford University Press.
Richards, B. A., & Lillicrap, T. P. (2019). Dendritic solutions to the credit assignment problem. Current Opinion in Neurobiology, *54*, 28–36. https://doi.org/10.1016/j.conb.2018.08.003
Rieke, F., Warland, D., de Ruyter van Steveninck, R., & Bialek, W. (1997). Spikes: Exploring the neural code. MIT Press.
Sacramento, J., Costa, R. P., Bengio, Y., & Senn, W. (2018). Dendritic cortical microcircuits approximate the backpropagation algorithm. Advances in Neural Information Processing Systems, *31*, 8721–8732.
Salinas, E., & Sejnowski, T. J. (2001). Correlated neuronal activity and the flow of neural information. Nature Reviews Neuroscience, *2*(8), 539–550. https://doi.org/10.1038/35086012
Schultz, W. (1998). Predictive reward signal of dopamine neurons. Journal of Neurophysiology, *80*(1), 1–27. https://doi.org/10.1152/jn.1998.80.1.1
Schultz, W., Dayan, P., & Montague, P. R. (1997). A neural substrate of prediction and reward. Science, *275*(5306), 1593–1599. https://doi.org/10.1126/science.275.5306.1593
Segev, I., & London, M. (2000). Untangling dendrites with quantitative models. Science, *290*(5492), 744–750. https://doi.org/10.1126/science.290.5492.744
Shadlen, M. N., & Newsome, W. T. (1998). The variable discharge of cortical neurons: Implications for connectivity, computation, and information coding. Journal of Neuroscience, *18*(10), 3870–3896. https://doi.org/10.1523/JNEUROSCI.18-10-03870.1998
Singer, W. (1999). Neuronal synchrony: A versatile code for the definition of relations? Neuron, *24*(1), 49–65. https://doi.org/10.1016/S0896-6273(00)80821-1
Singer, W., & Gray, C. M. (1995). Visual feature integration and the temporal correlation hypothesis. Annual Review of Neuroscience, *18*, 555–586. https://doi.org/10.1146/annurev.ne.18.030195.002551
Squire, L. R., Berg, D., Bloom, F. E., du Lac, S., Ghosh, A., & Spitzer, N. C. (2013). Fundamental neuroscience (4th ed.). Academic Press.
Sterratt, D., Graham, B., Gillies, A., & Willshaw, D. (2011). Principles of computational modelling in neuroscience. Cambridge University Press.
Stingl, M., Draguhn, A., & Both, M. (2025). A dendrite is a dendrite is a dendrite? Dendritic signal integration beyond the “antenna” model. Pflügers Archiv – European Journal of Physiology, *477*, 9–16. https://doi.org/10.1007/s00424-024-03004-0
Stuart, G. J., & Spruston, N. (2015). Dendritic integration: 60 years of progress. Nature Neuroscience, *18*(12), 1713–1721. https://doi.org/10.1038/nn.4157
Thorpe, S., Fize, D., & Marlot, C. (1996). Speed of processing in the human visual system. Nature, *381*(6582), 520–522. https://doi.org/10.1038/381520a0
Torcini, A. (2015). The Hodgkin-Huxley model [Lecture notes]. Université d’Aix-Marseille. https://perso.u-cergy.fr/~atorcini/MATDID/NEURO/HH15.pdf
Tsai, H. C., Zhang, F., Adamantidis, A., Stuber, G. D., Bonci, A., de Lecea, L., & Deisseroth, K. (2009). Phasic firing in dopaminergic neurons is sufficient for behavioral conditioning. Science, *324*(5930), 1080–1084. https://doi.org/10.1126/science.1168878
Ujfalussy, B. B., Makara, J. K., Lengyel, M., & Branco, T. (2018). Global and multiplexed dendritic computations under in vivo-like conditions. Neuron, *100*(3), 579–592. https://doi.org/10.1016/j.neuron.2018.10.004
Varela, F., Lachaux, J. P., Rodriguez, E., & Martinerie, J. (2001). The brainweb: Phase synchronization and large-scale integration. Nature Reviews Neuroscience, *2*(4), 229–239. https://doi.org/10.1038/35067550
Vasseur, F. (2013). Étude de l’organisation en hypercolonnes du cortex visuel [Doctoral thesis, Université Paris-Sud]. https://theses.hal.science/tel-00948588v1
Victor, J. D. (1999). Temporal coding in the visual system. Current Opinion in Neurobiology, *9*(4), 461–465. https://doi.org/10.1016/S0959-4388(99)80069-4
von der Malsburg, C. (1981). The correlation theory of brain function (Internal Report 81-2). Max Planck Institute for Biophysical Chemistry.
von der Malsburg, C. (1995). Binding in models of perception and brain function. Current Opinion in Neurobiology, *5*(4), 520–526. https://doi.org/10.1016/0959-4388(95)80014-X
Waelti, P., Dickinson, A., & Schultz, W. (2001). Dopamine responses comply with basic assumptions of formal learning theory. Nature, *412*(6842), 43–48. https://doi.org/10.1038/35083500
Wang, X. J. (2010). Neurophysiological and computational principles of cortical rhythms in cognition. Physiological Reviews, *90*(3), 1195–1268. https://doi.org/10.1152/physrev.00035.2008
Wennekers, T., Sommer, F., & Aertsen, A. (2003). Editorial: Cell assemblies. Theory in Biosciences, *122*(1), 1–6. https://doi.org/10.1016/S1431-7613(04)70070-1
Williams, S. R., & Stuart, G. J. (2003). Role of dendritic synapse location in the control of action potential output. Trends in Neurosciences, *26*(3), 147–154. https://doi.org/10.1016/S0166-2236(03)00035-3
Yang, G., Lai, C. S. W., Cichon, J., Ma, L., Li, W., & Gan, W. B. (2014). Sleep promotes branch-specific formation of dendritic spines after learning. Science, *344*(6188), 1173–1178. https://doi.org/10.1126/science.1249098
Zaki, Y., & Cai, D. J. (2024). Memory engram stability and flexibility. Neuropsychopharmacology, *49*, 1–10. https://doi.org/10.1038/s41386-024-01940-0
Zhang, X., et al. (2026). Physical mechanisms governing generalization and hallucination in deep learning for imaging through scattering media. Nature Communications, *17*, Article 72304. https://doi.org/10.1038/s41467-026-72304-z
Zhou, C., Li, Q., Li, C., Yu, J., Liu, Y., Wang, G., Zhang, K., Ji, C., Yan, Q., He, L., Peng, H., Li, J., & Wu, J. (2025). A comprehensive survey on pretrained foundation models: A history from BERT to ChatGPT. International Journal of Machine Learning and Cybernetics, *16*(12), 9851–9905. https://doi.org/10.1007/s13042-024-02443-6